
全部商品 / LEICA 電顯(EM)樣本製備設備 / LEICA EM Cyo CLEM 冷凍光電聯用系統

THUNDER Imager EM Cryo CLEM 冷凍光電聯用系統
THUNDER EM Cryo CLEM 冷凍光電聯用顯微鏡系統, 是一款採用 1). THUNDER 冷凍螢光光學顯微鏡系統與特殊的影像處理軟體 與 2). 結合冷凍樣本傳輸裝置 的新一代光電聯用的冷凍光學顯微鏡。
它提供了
1. 低溫電子顯微鏡觀察樣本的 “前期樣本定位”, 可事先在顯微鏡下確的受檢區域檢區域與定位, 再轉移樣本至電顯, 基於定位的同步, 可幫助我們在電鏡下快速找到我們的目標物.。
2. 特殊的影像軟體可以精確識別與處理感興趣的樣本與定位,然後成功安全的將樣本在冷凍環境下, 無縫接軌傳送到電子顯微鏡。完美的結合光學顯微鏡與電子顯微鏡的相互溝通.
它提供了
1. 低溫電子顯微鏡觀察樣本的 “前期樣本定位”, 可事先在顯微鏡下確的受檢區域檢區域與定位, 再轉移樣本至電顯, 基於定位的同步, 可幫助我們在電鏡下快速找到我們的目標物.。
2. 特殊的影像軟體可以精確識別與處理感興趣的樣本與定位,然後成功安全的將樣本在冷凍環境下, 無縫接軌傳送到電子顯微鏡。完美的結合光學顯微鏡與電子顯微鏡的相互溝通.
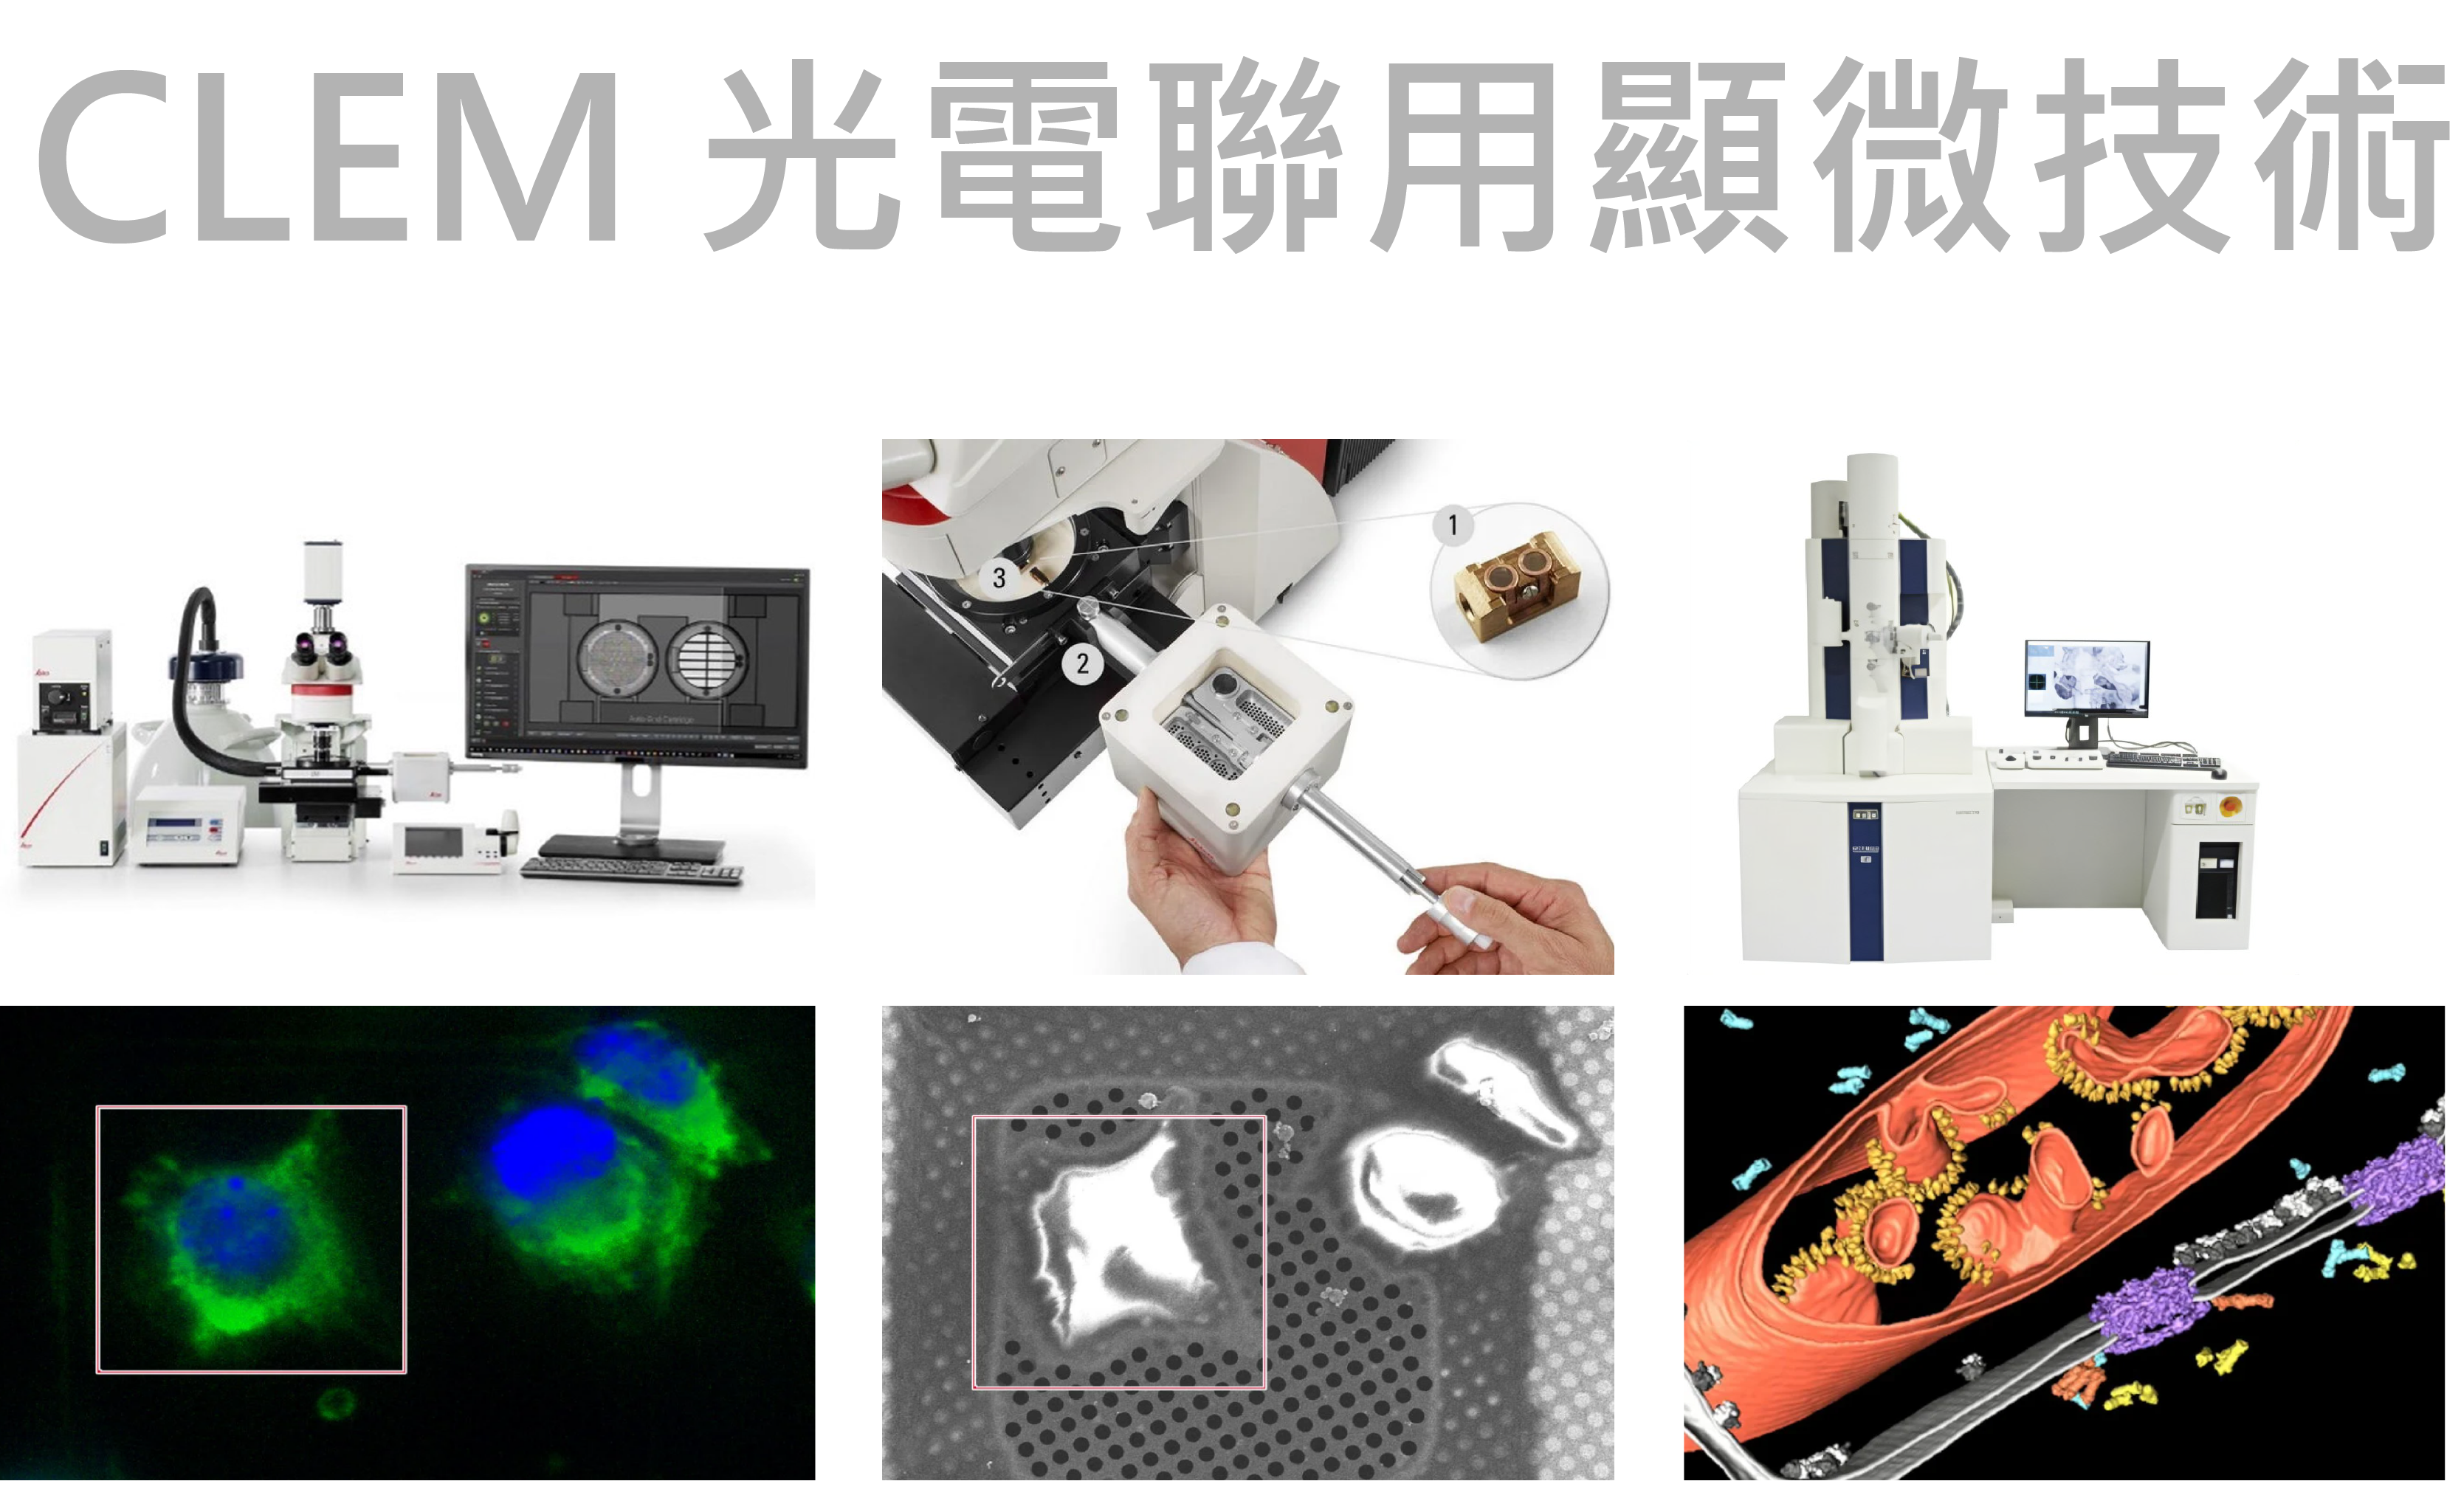
想像一下, 在同一條件製備下的樣本, 指定在同一樣品的區域定位, 通過來自螢光顯微鏡的指定螢光標定的細胞功能資訊, 再延伸下去, 通過電子顯微鏡取得超微結構資訊. 這就是兩種顯微技術模式的相互結合, 統稱為光電聯用顯微技術 (CLEM). 意即, 在同一製備樣本的定位下, 同時用於兩個顯微技術, 通過樣本相互傳輸, 獲取得到相互光電關聯的成像結果與資訊.
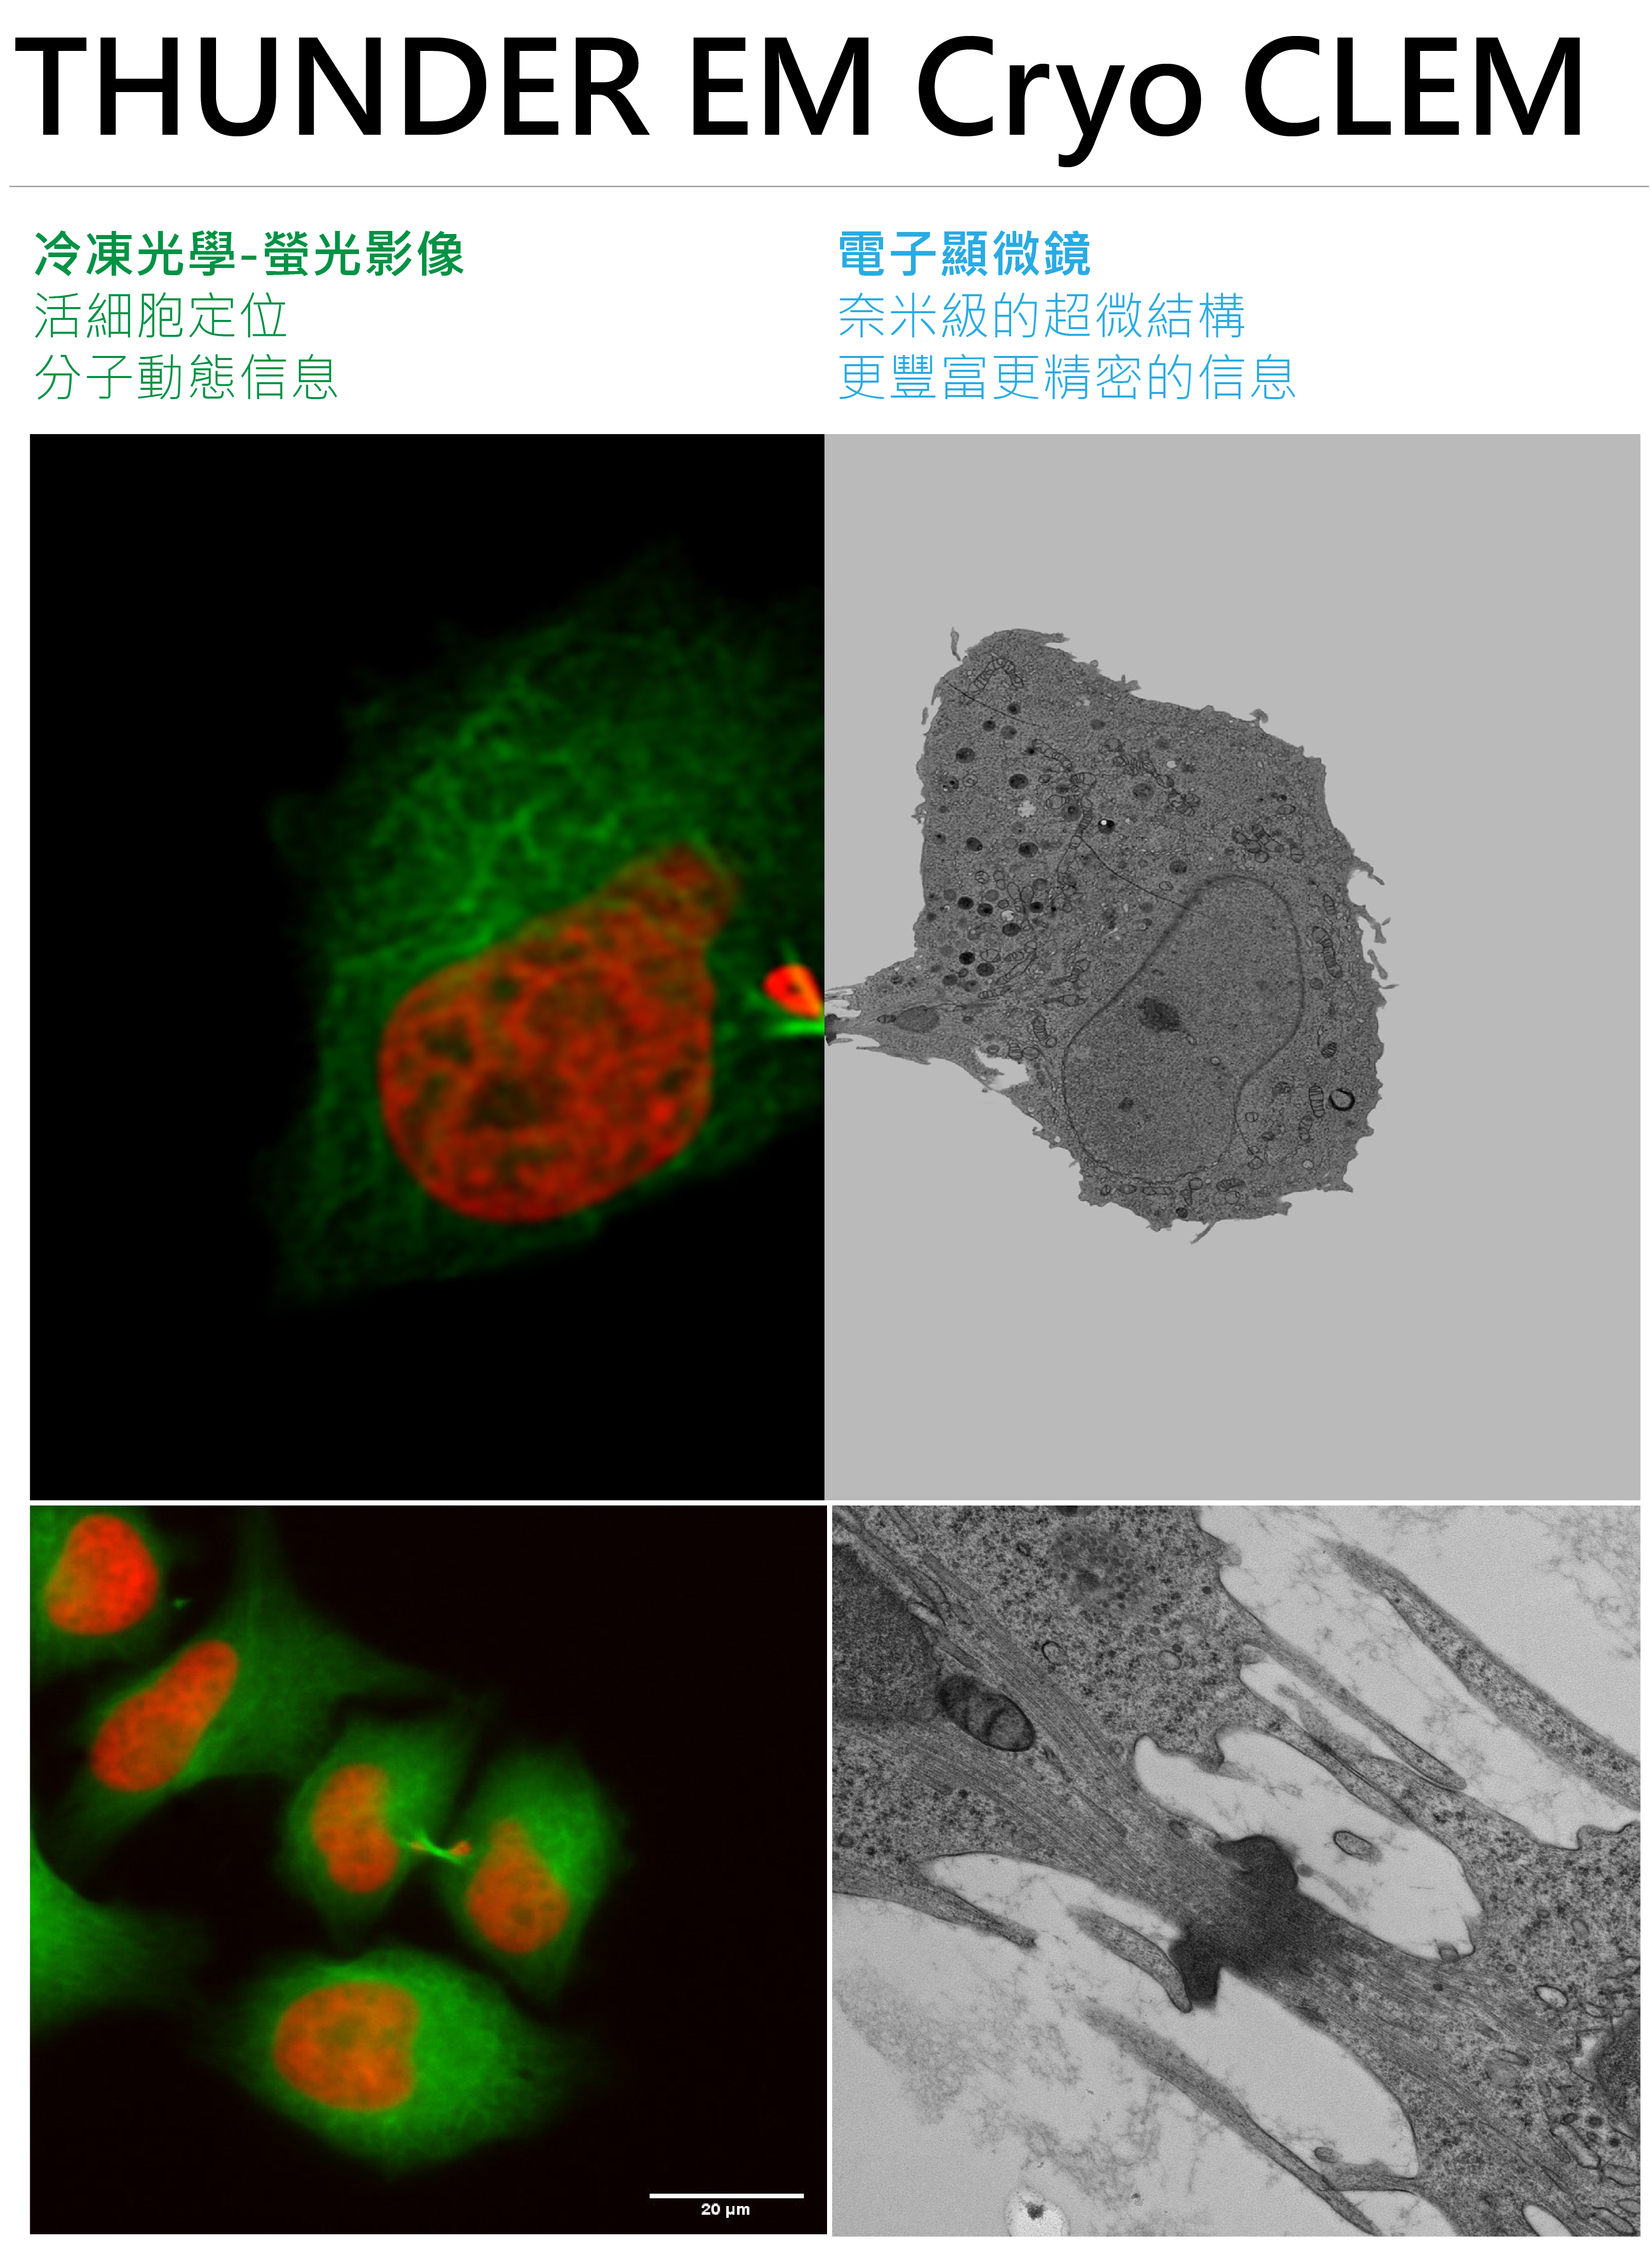
所以 CLEM ( Correlative Light and Electron Microscopy, CLEM ) 是一種結合光學顯微鏡與電子顯微鏡的光電聯用顯微鏡技術, 是將螢光顯微鏡的螢光標示功能和大視野 與 電子顯微鏡的超高解析度相互結合,彌補了各自成像的局限,可在受測樣本的原位獲得更全面、更精細的定位及結構資訊,近年來受到廣泛關注。目前,該技術廣泛應用於亞細胞結構與特定結構的觀察、蛋白質的精確定位、囊泡運輸及植物免疫等多個重要研究領域.
簡單來講, CLEM 就是結合了不同類型的光鏡和電鏡,實現了各自成像優勢的疊加,能夠同時獲得光鏡下的螢光標定定位資訊和電鏡下的高分辨結構資訊。
CLEM 的使用優勢包括 :
1. 超解析度螢光顯微技術的出現,突破了傳統光學顯微鏡的分辨極限,同時,電子成像技術種類也越來越豐富,觀察結果更清晰和深入;
2. 冷凍技術的出現,樣品處理更接近真實狀態,也有益於保護螢光基團,使樣本快速固定, 取得瞬間的動態變化, 使原位細胞結構成像成為可能;
3. 探針種類的改進使光鏡和電鏡之間的關聯成像更容易,這些技術的進步都極大地促進了 CLEM 的應用。
CLEM以【奈米級】解析度 ( nm ) 進一步取得樣本的精細結構,不僅能將一個區域內各層的資訊結合起來,還能對基體中的感興趣區域進行特異定位 – CLEM 就像在黑暗中摸索時有了燈塔一樣。
但是,要做到準確的光電關聯需要平衡可見視場與解析度、螢光基團的保護與電子襯度、成像速度與體積、樣品大小與真實狀態的保存,成像時間以及圖像解析度等之間的關係。
CLEM 的實際用途是什麼 ?
例如,可使用冷凍螢光顯微鏡對標記蛋白輕鬆檢測和定位,然後用冷凍電鏡作進一步的蛋白質結構分析。再比如說,您想要將動態資訊(如細胞間相互作用)與結構資訊結合起來,超越光解析度的限制.
不過,雖然聽起來很容易,但要順利地創建一個成功的(冷凍)CLEM工作流程會面臨許多挑戰。早在實驗設計階段,用戶就應該考慮以下問題:
如何製備樣本並使其保持最佳狀態 ?
如何識別和標記感興趣的目標結構 ?
如何在儀器之間安全高效地傳送樣本 ?
如何以合適的格式提供成像和目標資料,以便執行後續的電鏡步驟 ?
Leica THUNDER EM Cryo CLEM 在冷凍光電聯用顯微技術領域具有的指標性領導地位.
系統組成包括 :
1). THUNDER 冷凍螢光顯微鏡系統與特殊的影像處理軟體
2). 冷凍樣本傳輸裝置
它提供了 :
1. 低溫電子顯微鏡觀察樣本的 “前期樣本定位”, 可事先在顯微鏡下確的受檢區域檢區域與定位, 再轉移樣本至電顯, 基於定位的同步, 可幫助我們在電鏡下快速找到我們的目標物.。
2. 特殊的影像軟體可以精確識別與處理感興趣的樣本與定位,然後成功安全的將樣本在冷凍環境下, 無縫接軌傳送到電子顯微鏡。完美的結合光學顯微鏡與電子顯微鏡的相互溝通.
用戶可以利用這些解決方案的優勢 :
1). 立即識別合適的細胞定位,獲得高解析度的冷凍共聚焦資料 (CLSM),或將螢光資訊 (WF) 與超微結構環境 (EM) 結合起來。
2). 深入瞭解真實的細胞結構生物學
- 採用 THUNDER 技術進行快速、高解析度的成像,即時去除影像無聚焦的模糊信號
- 精確、無縫地將圖像資料傳輸到不同的電子顯微鏡解決方案
- 在整個成像工作流程和樣本傳送過程中保持最佳的冷凍條件
3). 簡單、可重複的工作流程
- 如果您需要在電子顯微鏡中快速找到感興趣的區域,可輕鬆標記該區域並在樣本傳送過程中匯出座標。
- 直觀的軟體將引導您完成整個工作流程,使您快速有效地獲得所需的結果,有助您使用電子顯微鏡成功進行研究。
- 為了獲得高解析度、無焦外模糊的成像結果,可使用 THUNDER 進行後期處理。
整體而言, 使用者可以獲得的優勢 :
1. 輕鬆而精確地定位目標、採集資料——軟體將引導您逐步完成成像工作流程
2. 輕鬆成像——只需標記您感興趣的區域,軟體即可自動捕捉並精確進行全景大圖拼接
3. 使用 THUNDER 進行後期處理,獲得高解析度、不模糊的圖像
4. 快速、可重複獲得的結果——您可以保存和調用完整的實驗設置
Coral Life workflow是指在電顯樣本製備與應用上的技術及其設備, 是通往實現探索未知的科學道路,不僅推動尖端科技的進程, 還積極解決工作上所面臨的問題,更重要的是,樹立新的技術標竿與建構標準化的工作流程。
在整片細胞中要正確找到能研究的目標,像是大海撈針, 費時且費力,LEICA Coral Life workflow 結合了 Thunder Imager 和 特製化載具,幫助研究者能在正確的時間點觀察特定的目標。
為了能在找到特定目標後,迅速將細胞急速冷凍固定狀態,Coral Life 的工作流程中 ,使用了專用的細胞培養盤,可維持細胞正常生長,也與冷凍系統相容。
Leica CLEM 成功有效的解決方案的關鍵之一, 便是座標系統的精準建立與搜尋. 無論是室溫還是冷凍CLEM 實驗,光電聯用顯微成像對實驗的成功都至關重要。必須建立座標系統,而且在不同的成像模式中都能很好地被識別。然後,通過圖像整合(用大視野預覽資料)或絕對位置座標(x、y、z值)疊加成像資訊,用於高精度檢索高解析度資訊。
Cryo-CLEM(冷凍光電聯用顯微技術 )
在Cryo-CLEM(冷凍光電聯用顯微技術)中,兩個成像步驟都在冷凍條件下進行,這意味著需要可靠的冷凍樣本製備工作流程。該流程包括可靠的樣本玻璃化冷凍、安全的樣本轉移和穩定的冷凍光學成像。應特別注意冰污染:高濕度環境和含冰污染的液氮容易導致樣本處於風險之中。
Coral Cryo 可以 :
Coral Life 工作流程簡介
使用 Leica Coral Life 的 “活細胞到玻璃化冷凍”工作流程,您可以在安全合適的生理環境中通過螢光顯微鏡對罕見的細胞事件進行跟蹤和成像。一旦發生感興趣的事件,您可瞬間將樣本玻璃化冷凍,然後在常溫電鏡(如:透射電鏡、掃描電鏡、FIB聚焦離子束掃描電鏡)中取得超微結構, 再進一步分析。
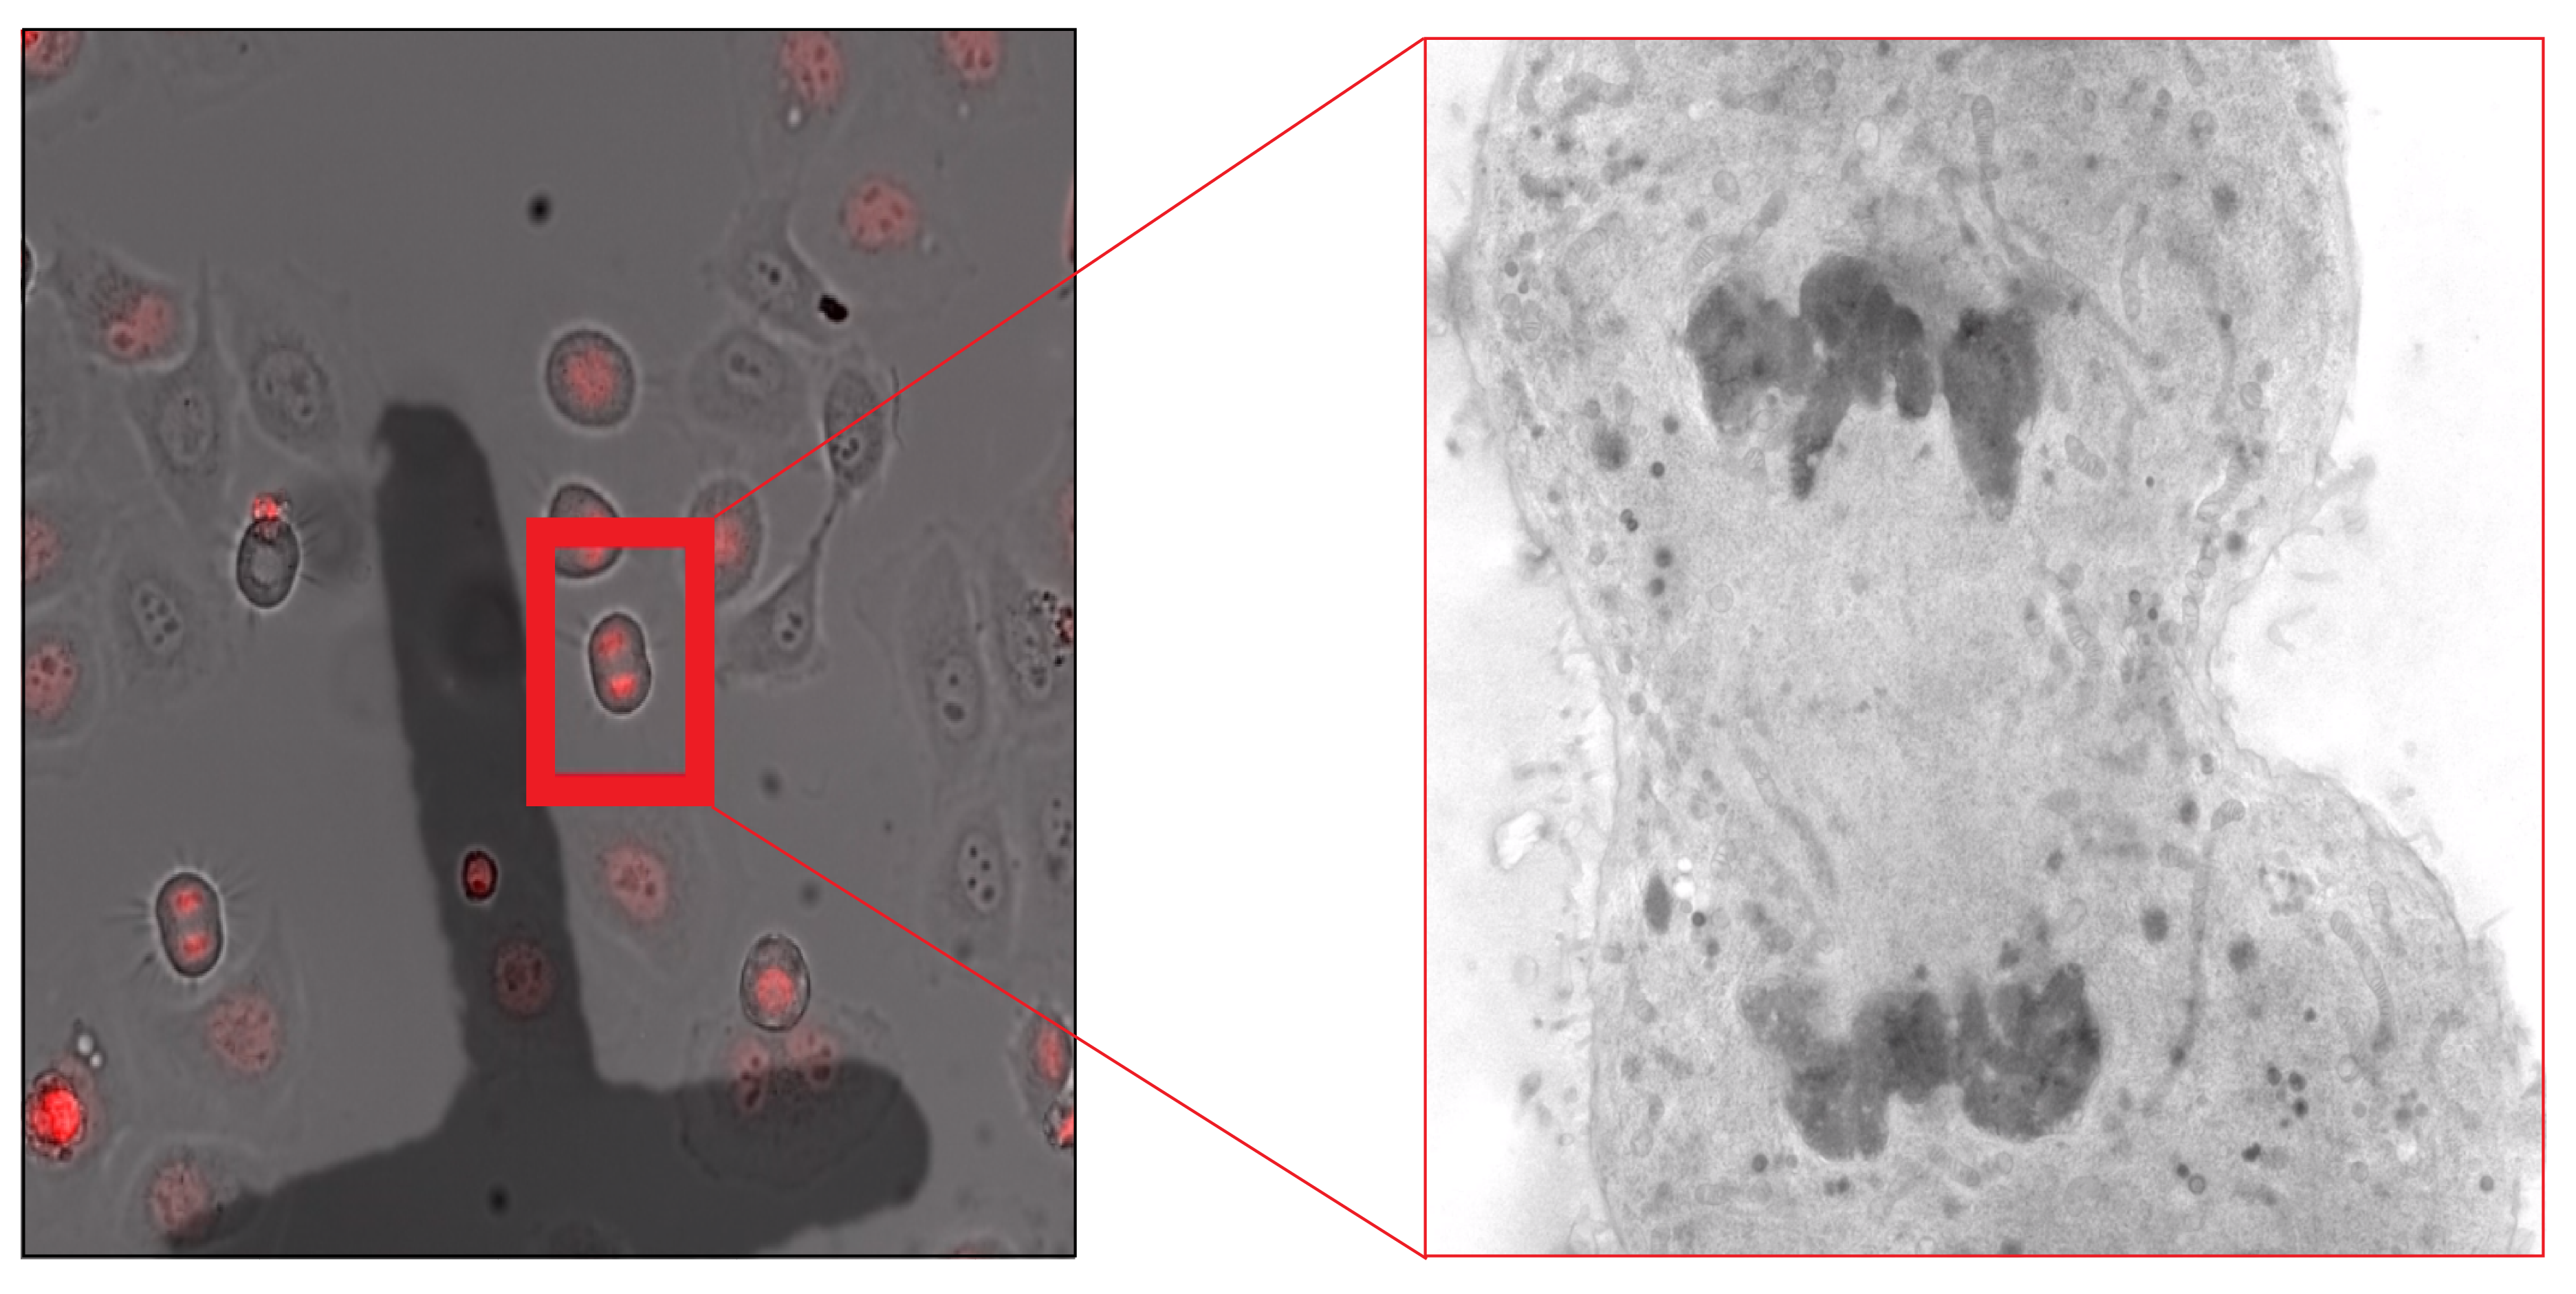
Coral Cryo 工作流程简介
冷凍電子顯微成像可以揭示蛋白質在其自然狀態下,通常是多構象狀態下的結構,而X射線晶體學成像則無法提供此類重要資訊。將來自冷凍電鏡的超微結構資料與使用 STELLARIS Cryo 獲得的高精度共聚焦目標定位資料兩者相結合,這是一種強大的 Cryo-CLEM 方法。
Leica顯微系統的冷凍光電聯用顯微成像工作流程 Coral Cryo 則優化了硬體和軟體,實現兩種成像模式之間的平穩轉換。Coral Cryo與全面的 Cryo-EM 樣本製備產品系列相結合,旨在滿足 Cryo-CLEM 和 Cryo-ET 用戶群體中日益增長的需求,提高這類實驗的成功率。
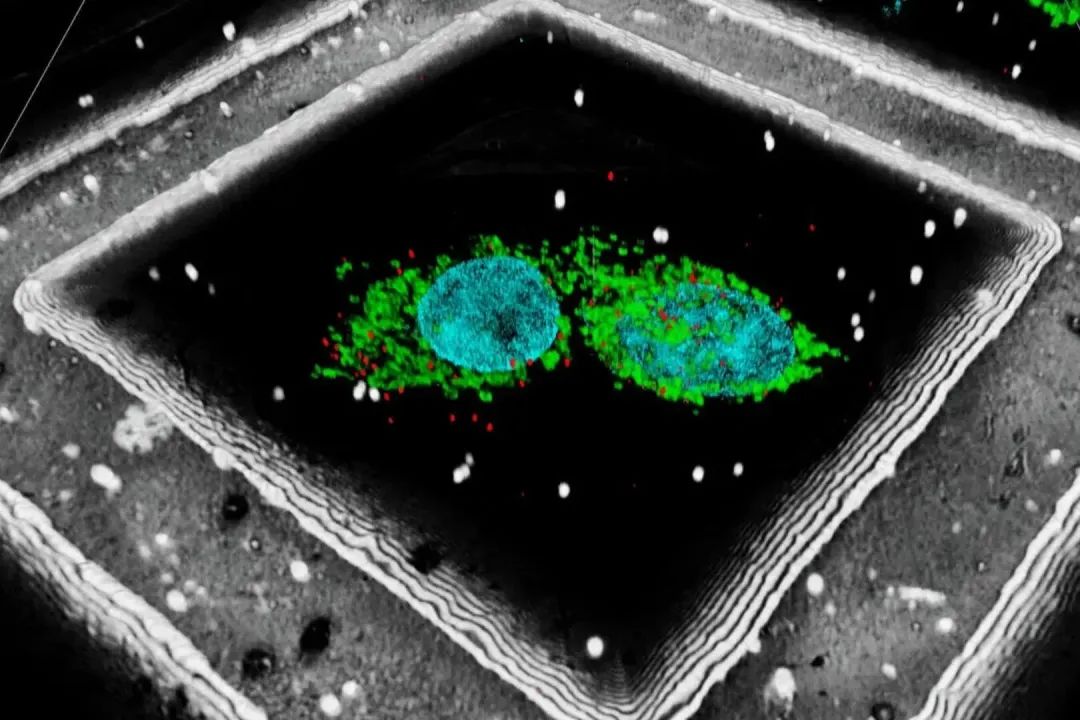
用淡藍色(Hoechst,細胞核)、綠色(MitoTracker Green,粒線體)、紅色(Bodipy,脂質) 標記的LNG-non-LNGHeLa細胞。白色 – 螢光珠,反射模式 – 網格比例尺。
在Cryo-CLEM(冷凍光電聯用顯微技術)中,兩個成像步驟都在冷凍條件下進行,這意味著需要可靠的冷凍樣本製備工作流程。該流程包括可靠的樣本玻璃化冷凍、安全的樣本轉移和穩定的冷凍光學成像。應特別注意冰污染:高濕度環境和含冰污染的液氮容易導致樣本處於風險之中。
Coral Cryo 可以 :
- 安全清潔地處理樣本;
- 確保穩定、長期的冷凍光學成像;
- 使用 Coral Cryo 軟體在生物分子的原生環境中對生物分子進行成像和精確定位。
Coral Life 工作流程簡介
使用 Leica Coral Life 的 “活細胞到玻璃化冷凍”工作流程,您可以在安全合適的生理環境中通過螢光顯微鏡對罕見的細胞事件進行跟蹤和成像。一旦發生感興趣的事件,您可瞬間將樣本玻璃化冷凍,然後在常溫電鏡(如:透射電鏡、掃描電鏡、FIB聚焦離子束掃描電鏡)中取得超微結構, 再進一步分析。
Coral Cryo 工作流程简介
冷凍電子顯微成像可以揭示蛋白質在其自然狀態下,通常是多構象狀態下的結構,而X射線晶體學成像則無法提供此類重要資訊。將來自冷凍電鏡的超微結構資料與使用 STELLARIS Cryo 獲得的高精度共聚焦目標定位資料兩者相結合,這是一種強大的 Cryo-CLEM 方法。
Leica顯微系統的冷凍光電聯用顯微成像工作流程 Coral Cryo 則優化了硬體和軟體,實現兩種成像模式之間的平穩轉換。Coral Cryo與全面的 Cryo-EM 樣本製備產品系列相結合,旨在滿足 Cryo-CLEM 和 Cryo-ET 用戶群體中日益增長的需求,提高這類實驗的成功率。
用淡藍色(Hoechst,細胞核)、綠色(MitoTracker Green,粒線體)、紅色(Bodipy,脂質) 標記的LNG-non-LNGHeLa細胞。白色 – 螢光珠,反射模式 – 網格比例尺。
THUNDER Imager EM Cryo CLEM
冷凍光電聯用系統 工作流程
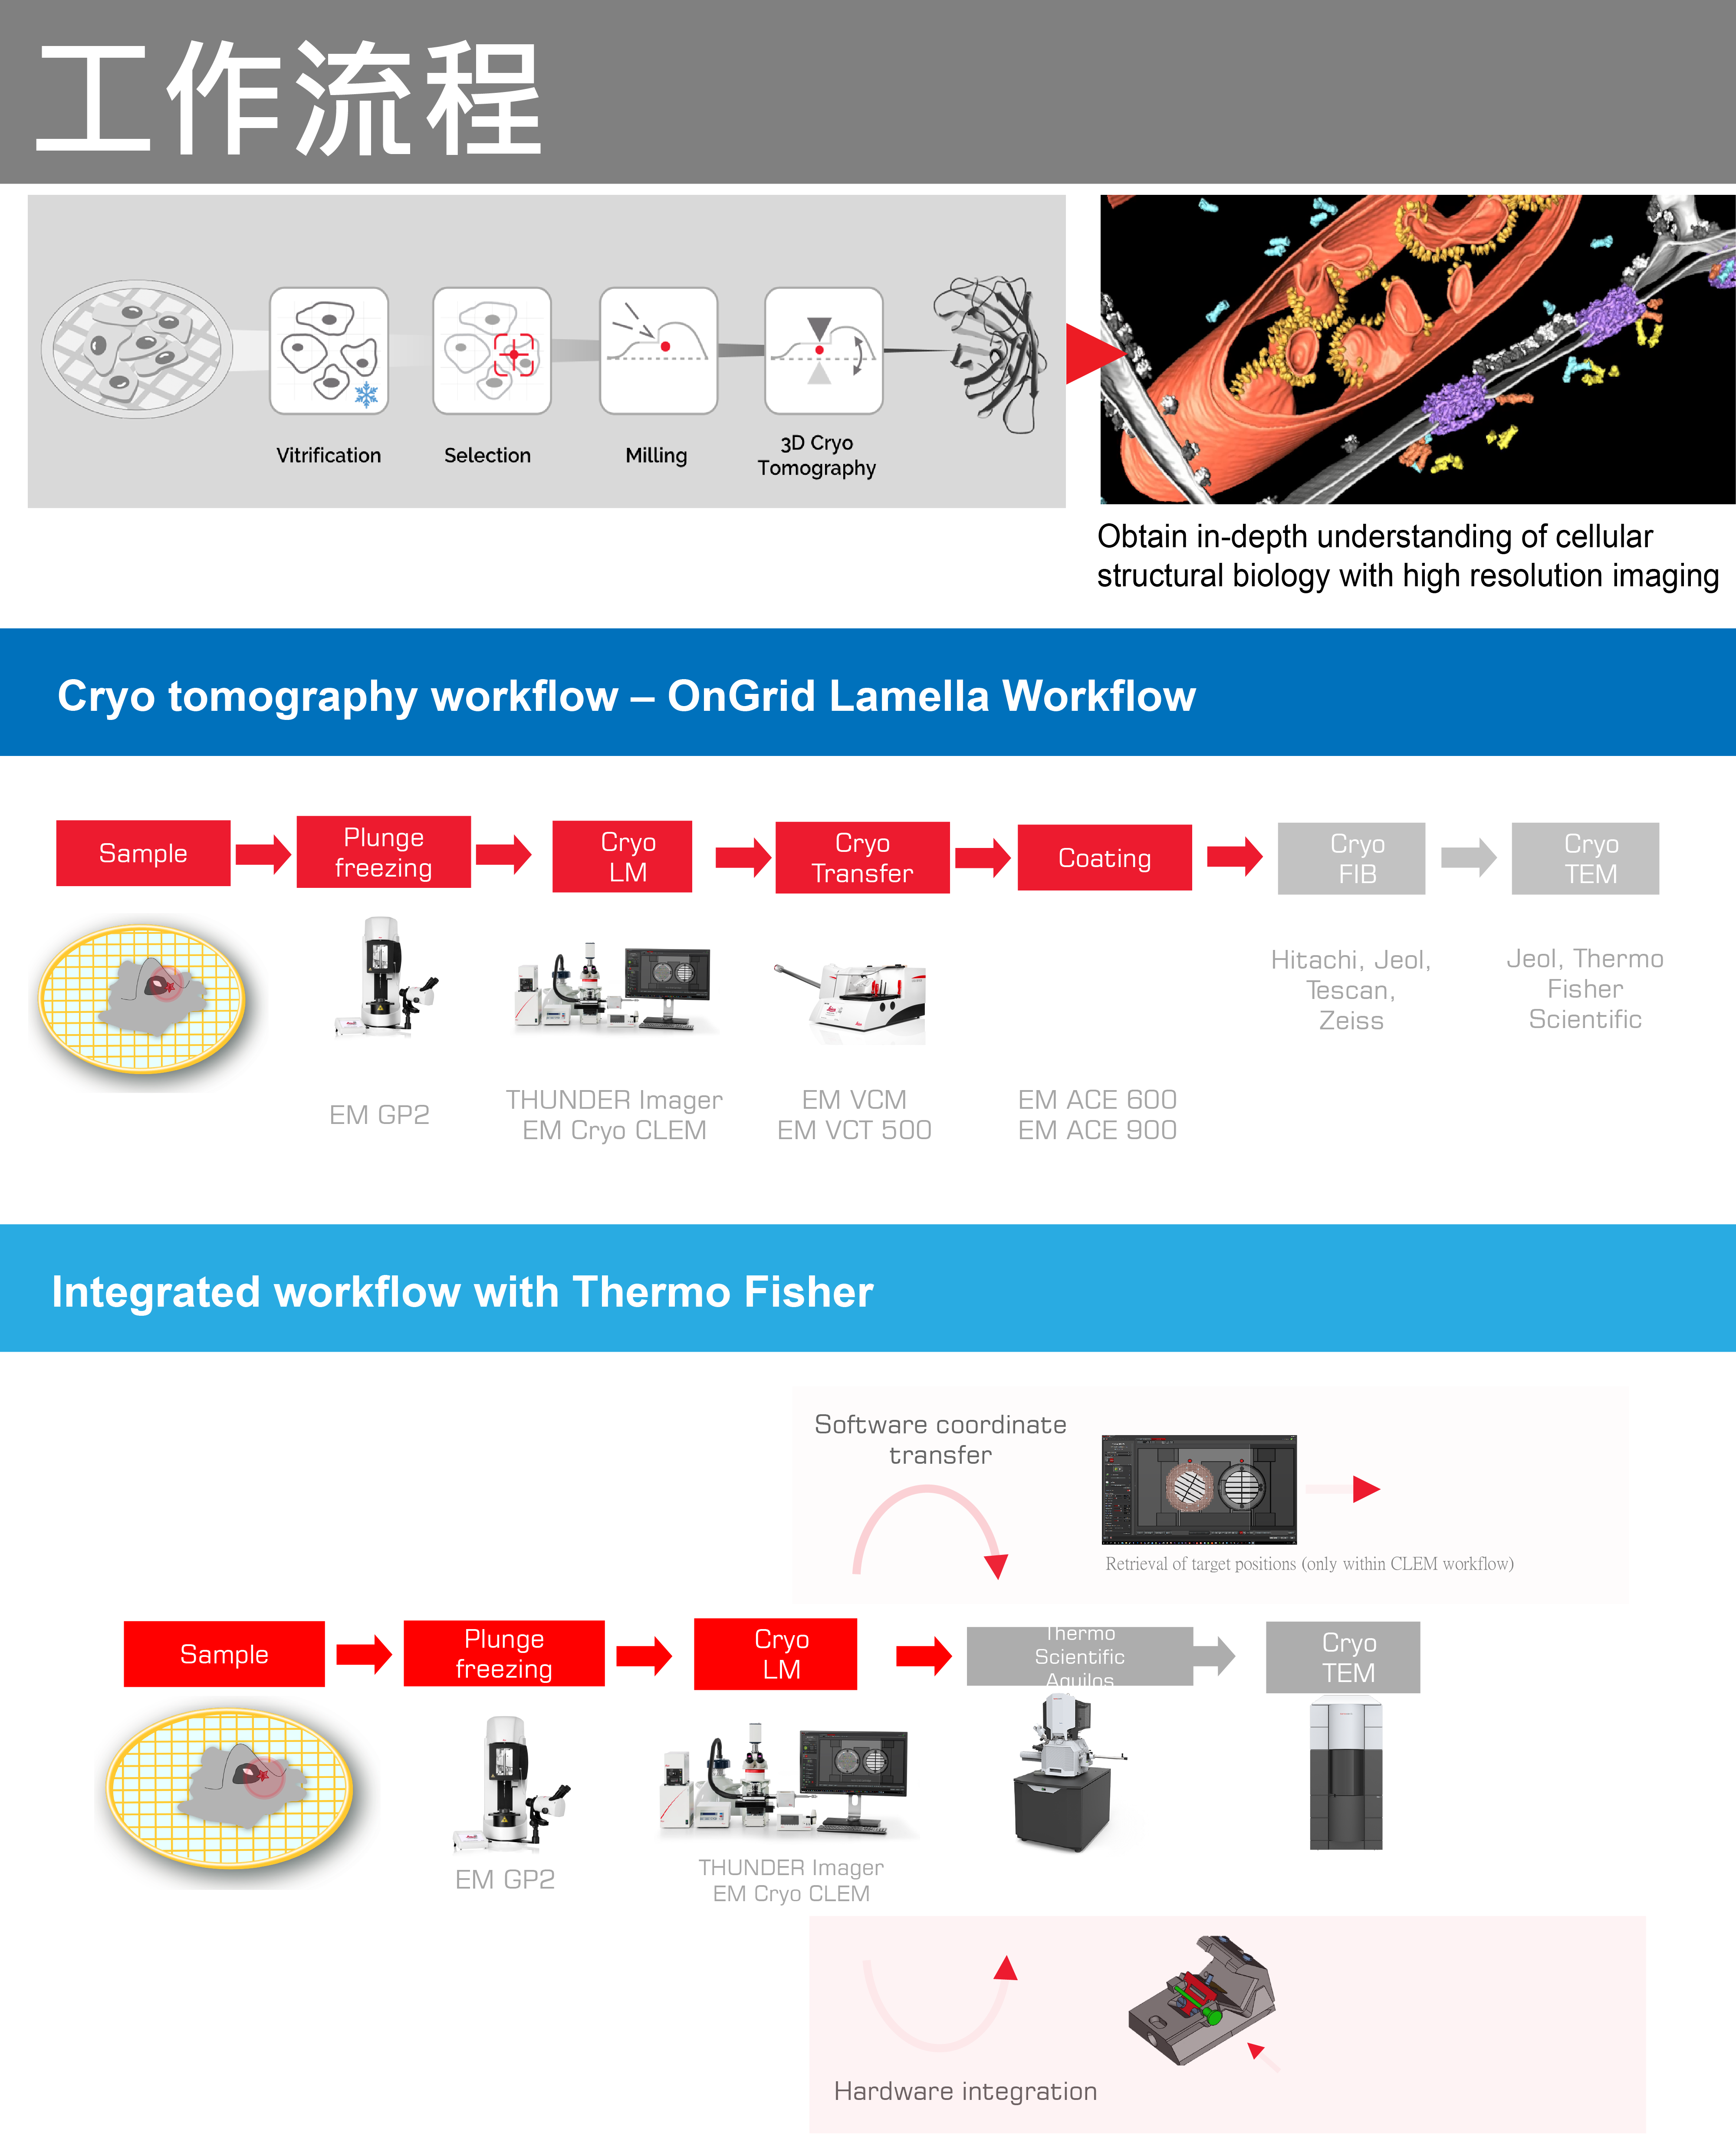
在整個可靠的 Cryo CLEM 工作流程, LEICA 提供了冷凍光電聯用的最佳解決方案 :
1. 從影像的質量與螢光來深入確定樣品規格
2. 使用者可以輕鬆檢索目標區域
3. 使用者以更少的步驟進行安全的樣品轉移
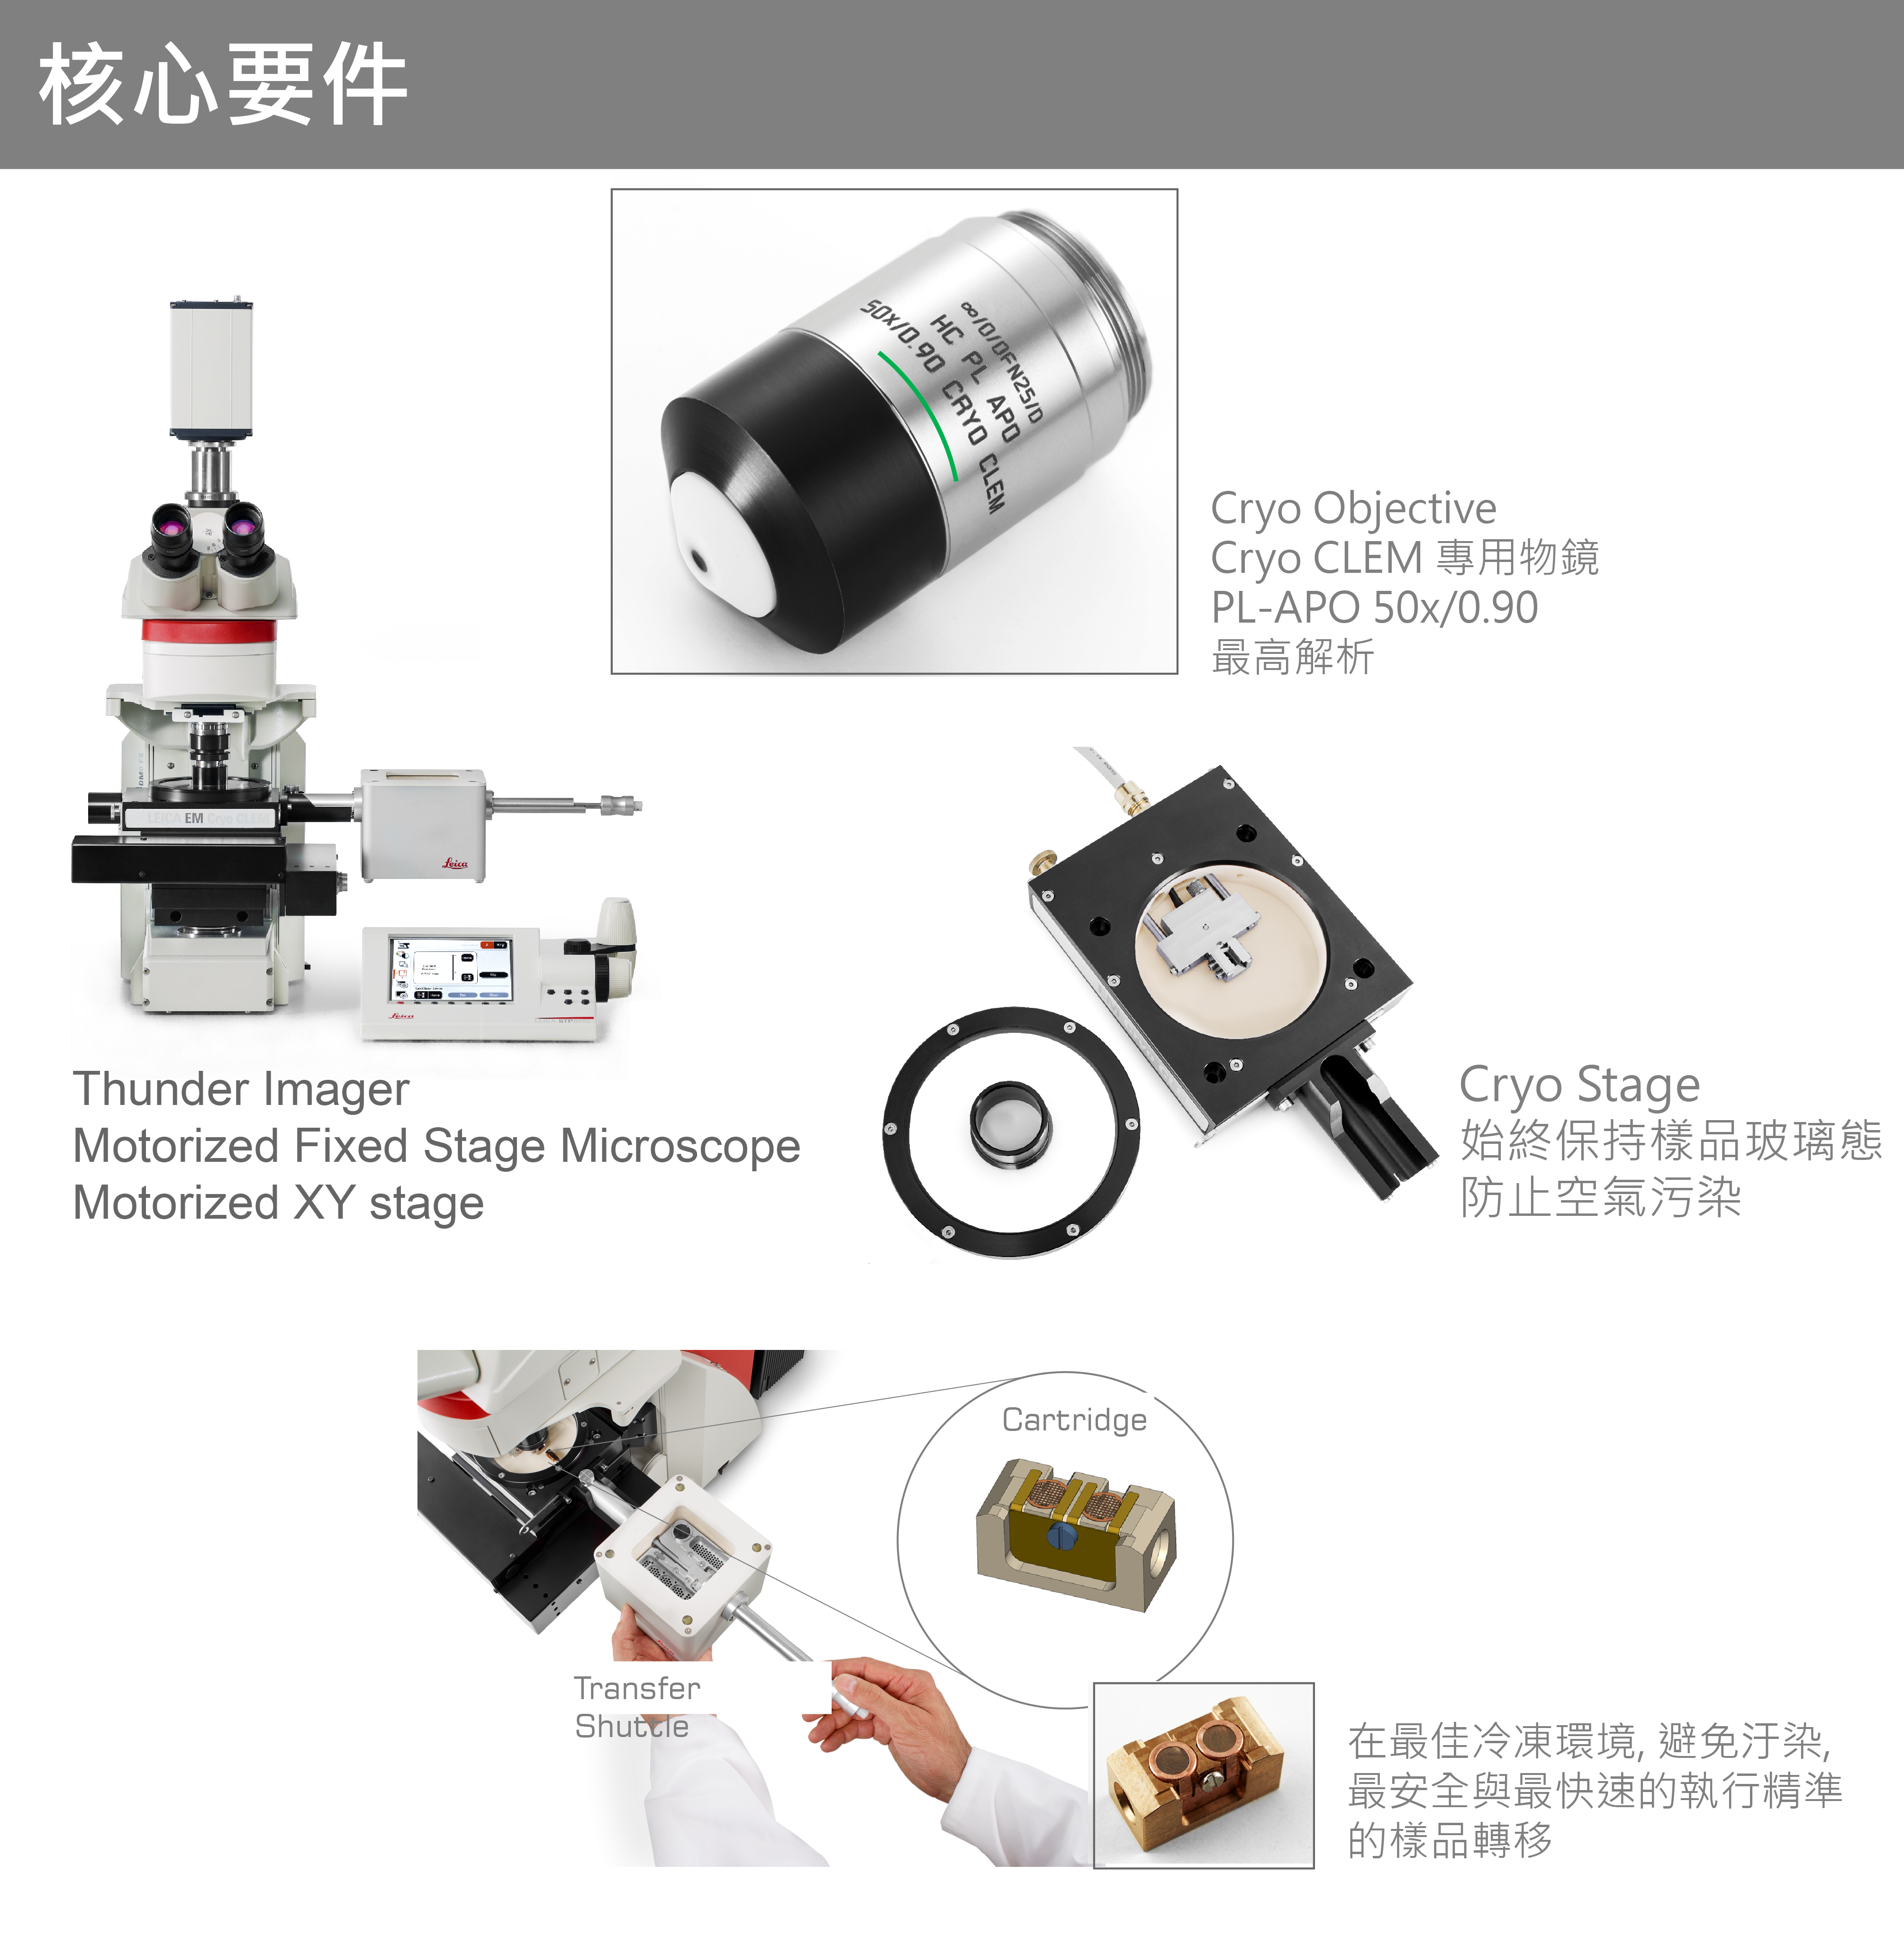
冷凍電子顯微鏡 (Cryo EM) 工作流程讓我們能夠獲取到細胞蛋白質社會學的3D資料,其解析度更是達到前所未有的1納米以下。工作流程中有一個步驟,需要從樣品獲取目標位置納米級解析度的圖像,而要得到這樣的結果,就需要用到冷凍光學顯微鏡。這種顯微鏡如果用於低溫電子顯微鏡工作流程,通常就稱為 Cryo CLEM。
在使用冷凍電子顯微鏡, 特別是冷凍斷層掃描時,為確保工作流程可以穩定生成所需的資料,冷凍光學顯微鏡是檢查樣本品質並識別目標位元點的重要工具。所以必須通過對活細胞樣本進行完全玻璃化冷凍處理來保持這種原生狀態。
Strnad et al., Sci Rep. 2015 Dec 10;5:18029. doi: 10.1038/srep18029. [1]
Schorb et al., J Struct Biol. 2017 Feb;197(2):83-93. doi: 10.1016/j.jsb.2016.06.020. [2]
Kolovou et al., Methods Cell Biol. 2017;140:85-103. doi: 10.1016/bs.mcb.2017.03.011. [3]
Schorb & Sieckmann, Methods Cell Biol. 2017;140:321-333. doi: 10.1016/bs.mcb.2017.03.012. [4]
Yang et al., J Struct Biol. 2021 Feb 18;213(2):107709. doi: 10.1016/j.jsb.2021.107709. [5]
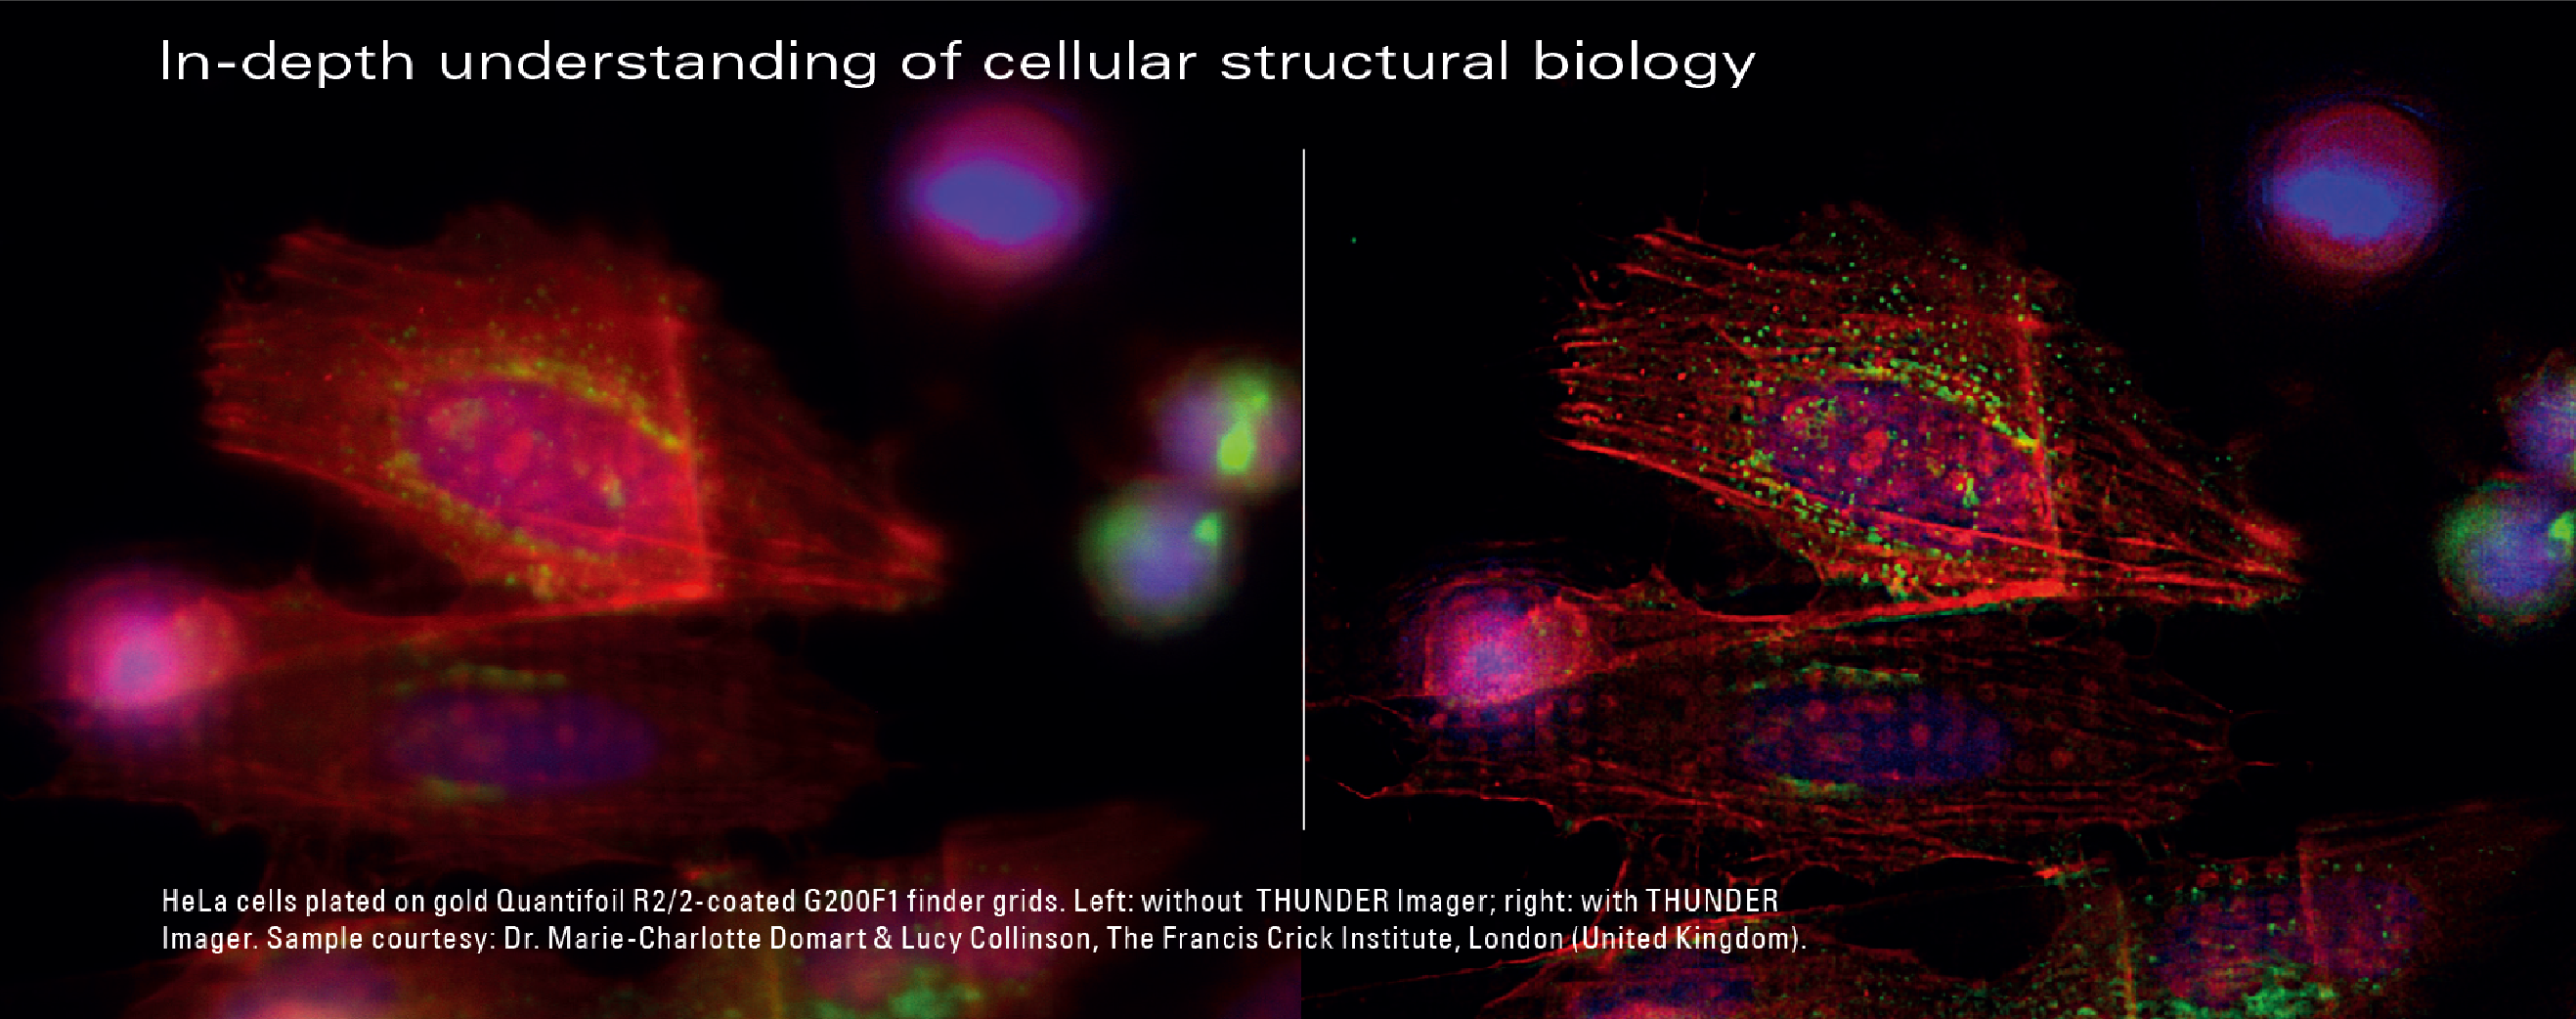
使用 THUNDER 可以更清晰地識別和顯示您感興趣的區域
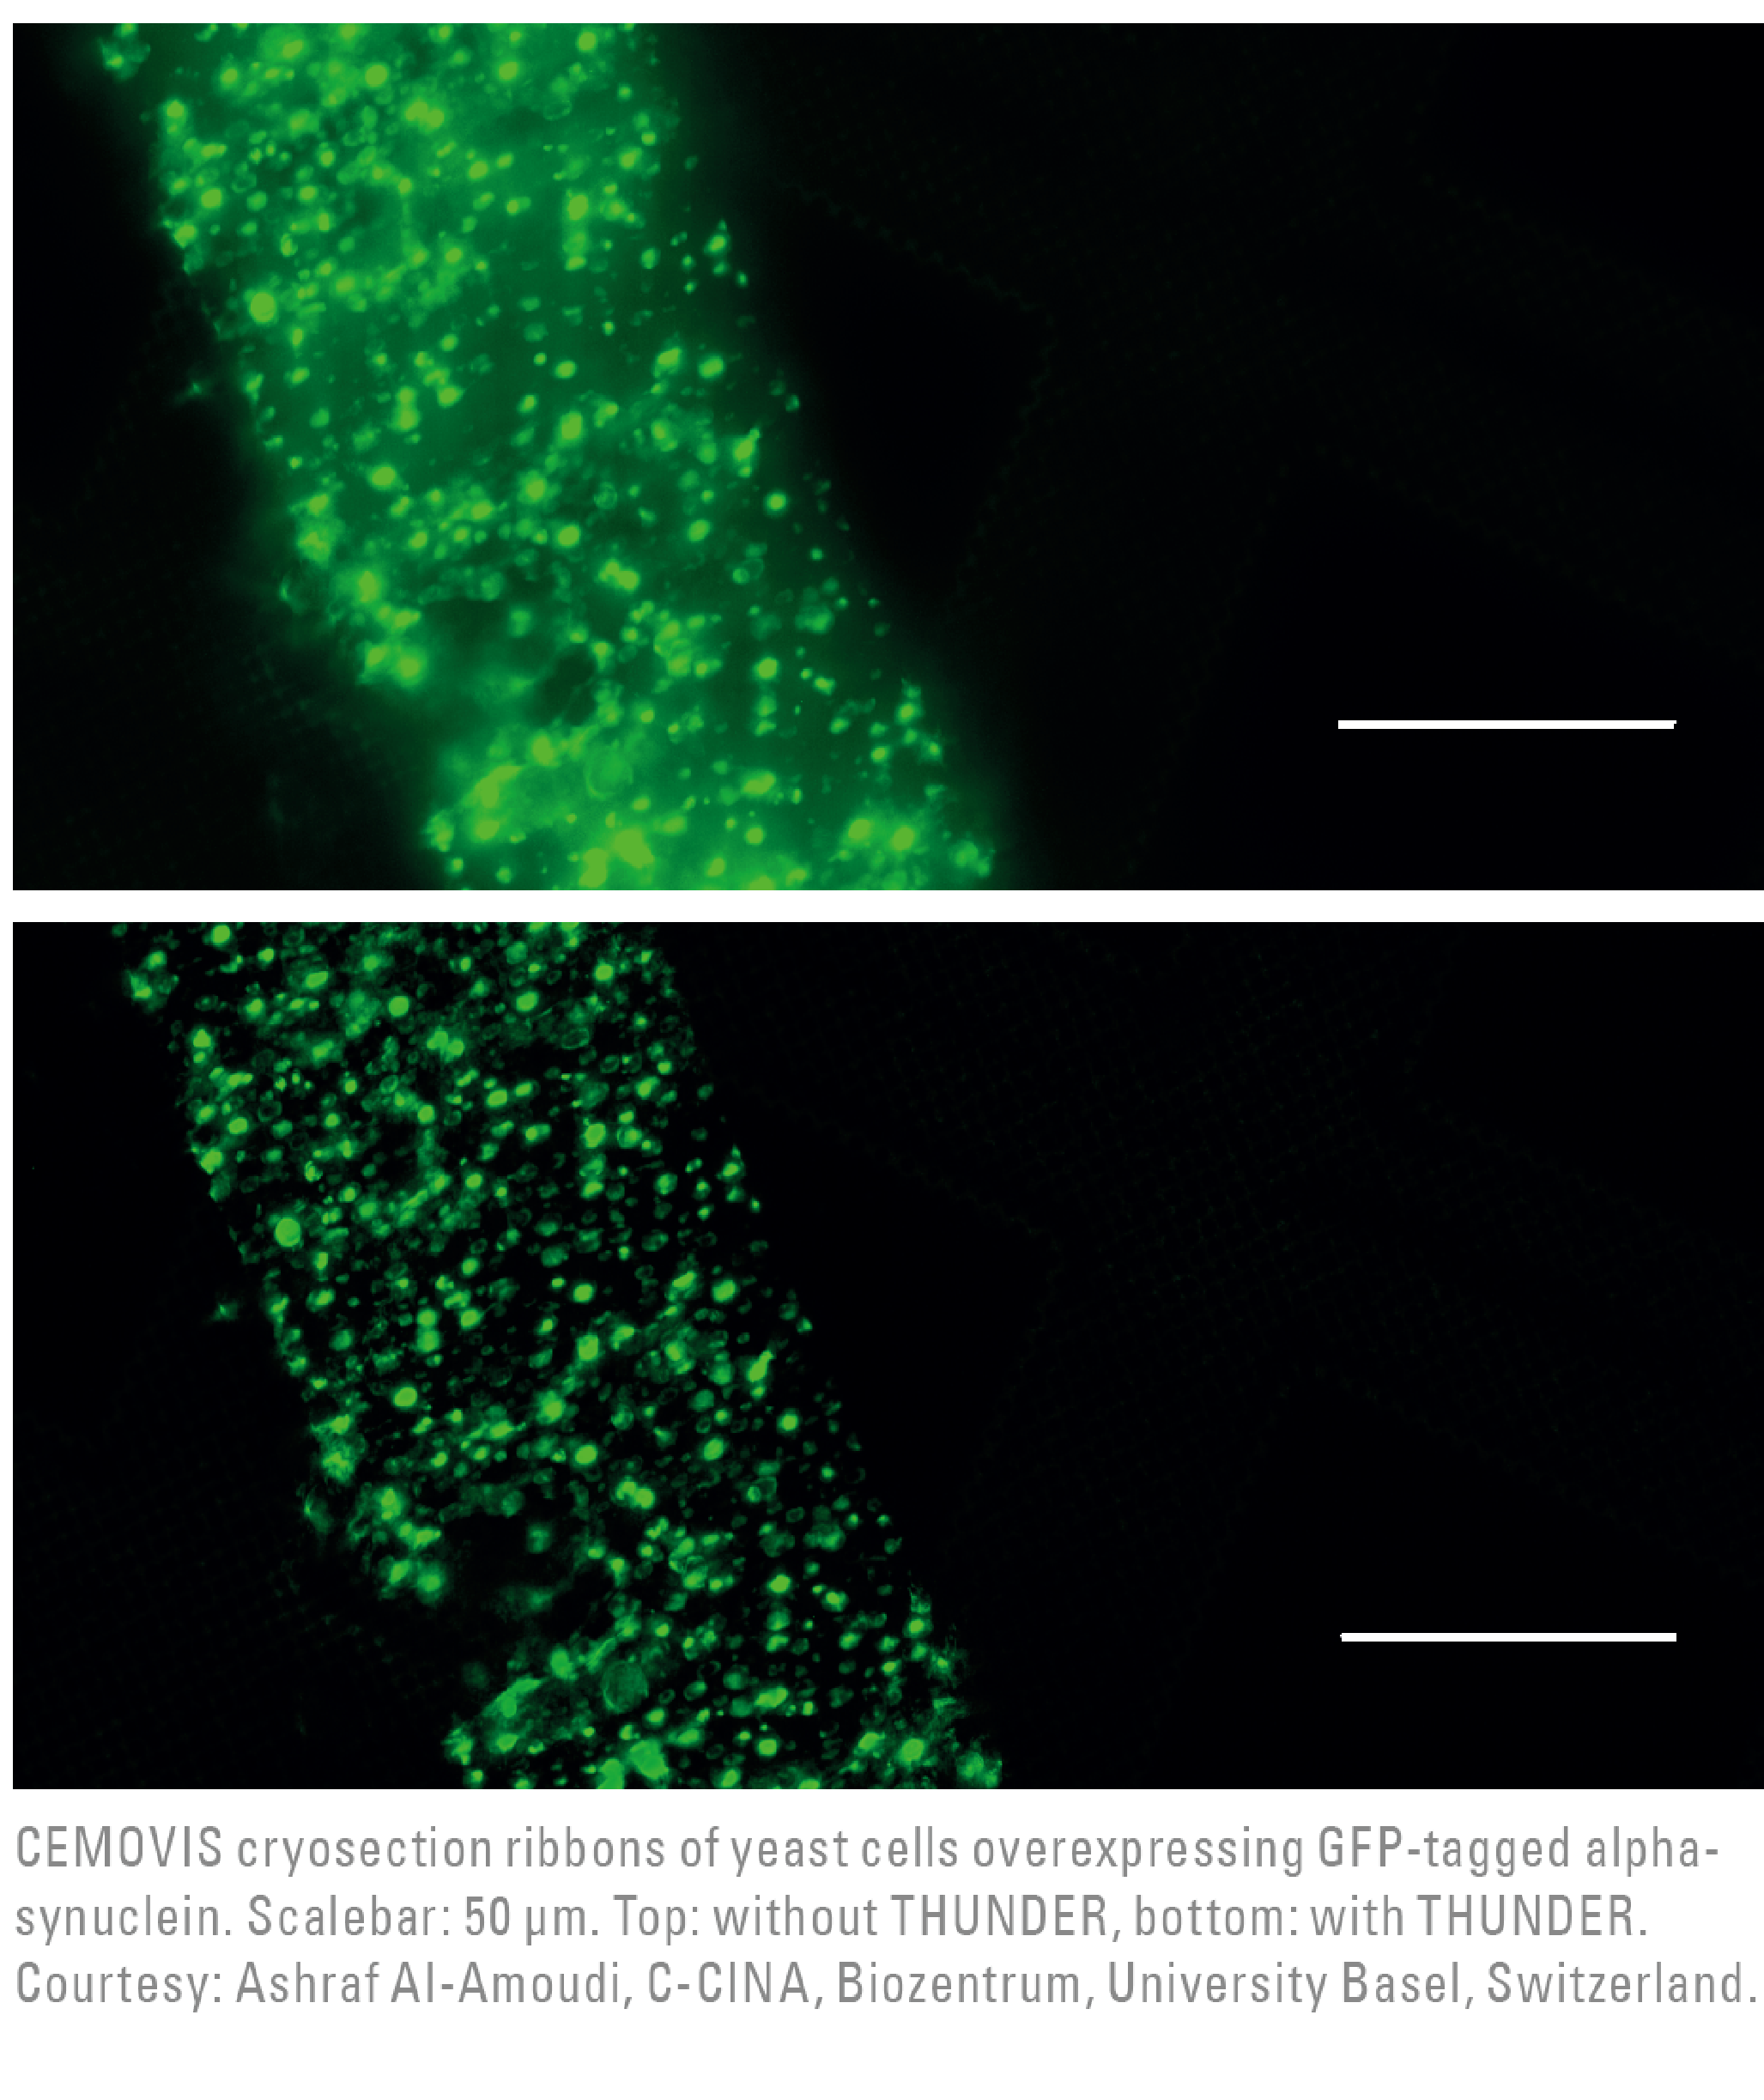
為了最佳顯示細胞結構,THUNDER EM Cryo CLEM 成像系統將高解析度的冷凍物鏡與 LEICA顯微系統的 THUNDER 技術相結合。 從而獲得清晰、無焦外模糊的圖像。
THUNDER 採用創新的徠卡成像解析技術 (Computational Clearing) 方法,可消除寬場觀察時會出現的離焦模糊信號。 THUNDER EM Cryo CLEM 成像系統還包括一個50倍/數值孔徑0.9的物鏡。 與常用的長工作距離物鏡相比, 該透鏡專門為玻璃化樣本的高解析度成像而設計。 得益於寬場顯微鏡的高速度和易用性,您能更好地識別和觀察細胞結構的微小細節。
上圖: HeLa 細胞放在 Quantifoil R2 / 2 金膜的 G200F1 載網上。
細胞使用 GFP-TGN46(標記反面高爾基網狀結構TGN)和 mCherry-Lifeact(標記纖維狀肌動蛋白)轉染。 細胞核使用 Hoechst 33342 染色。 樣本由英國倫敦法蘭西斯·克裡克研究所的 Lucy Collinson 提供。
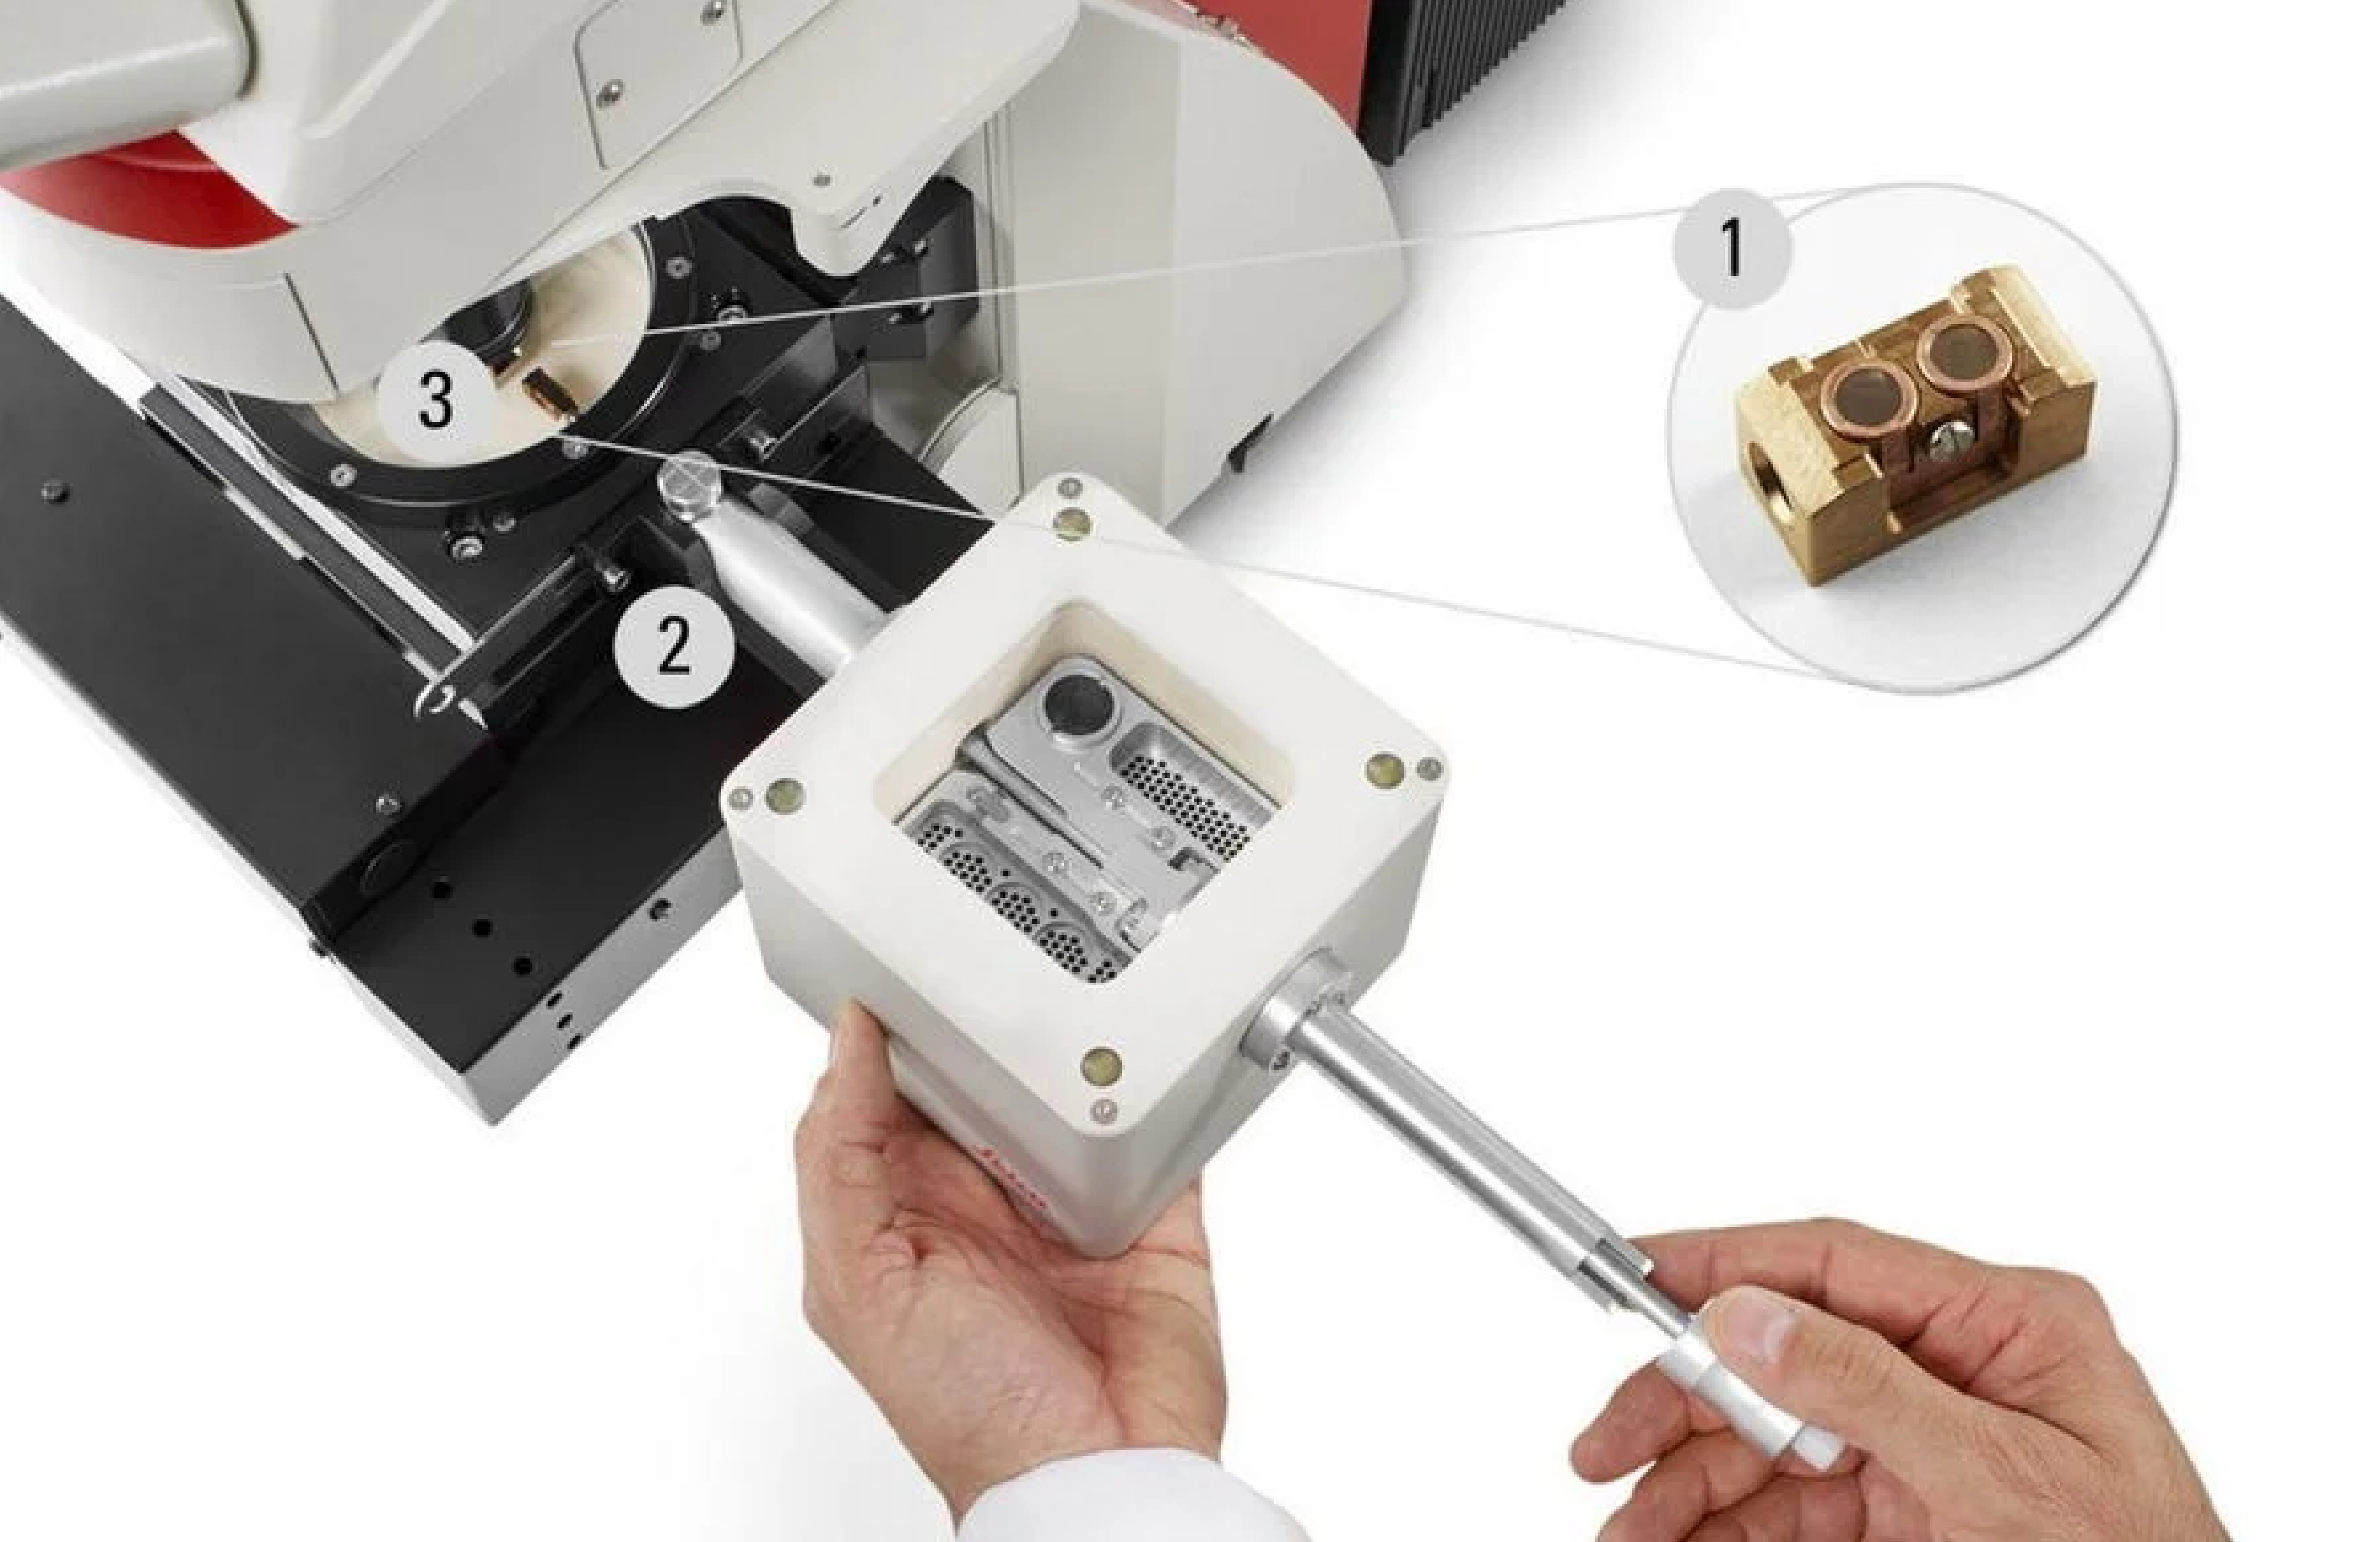
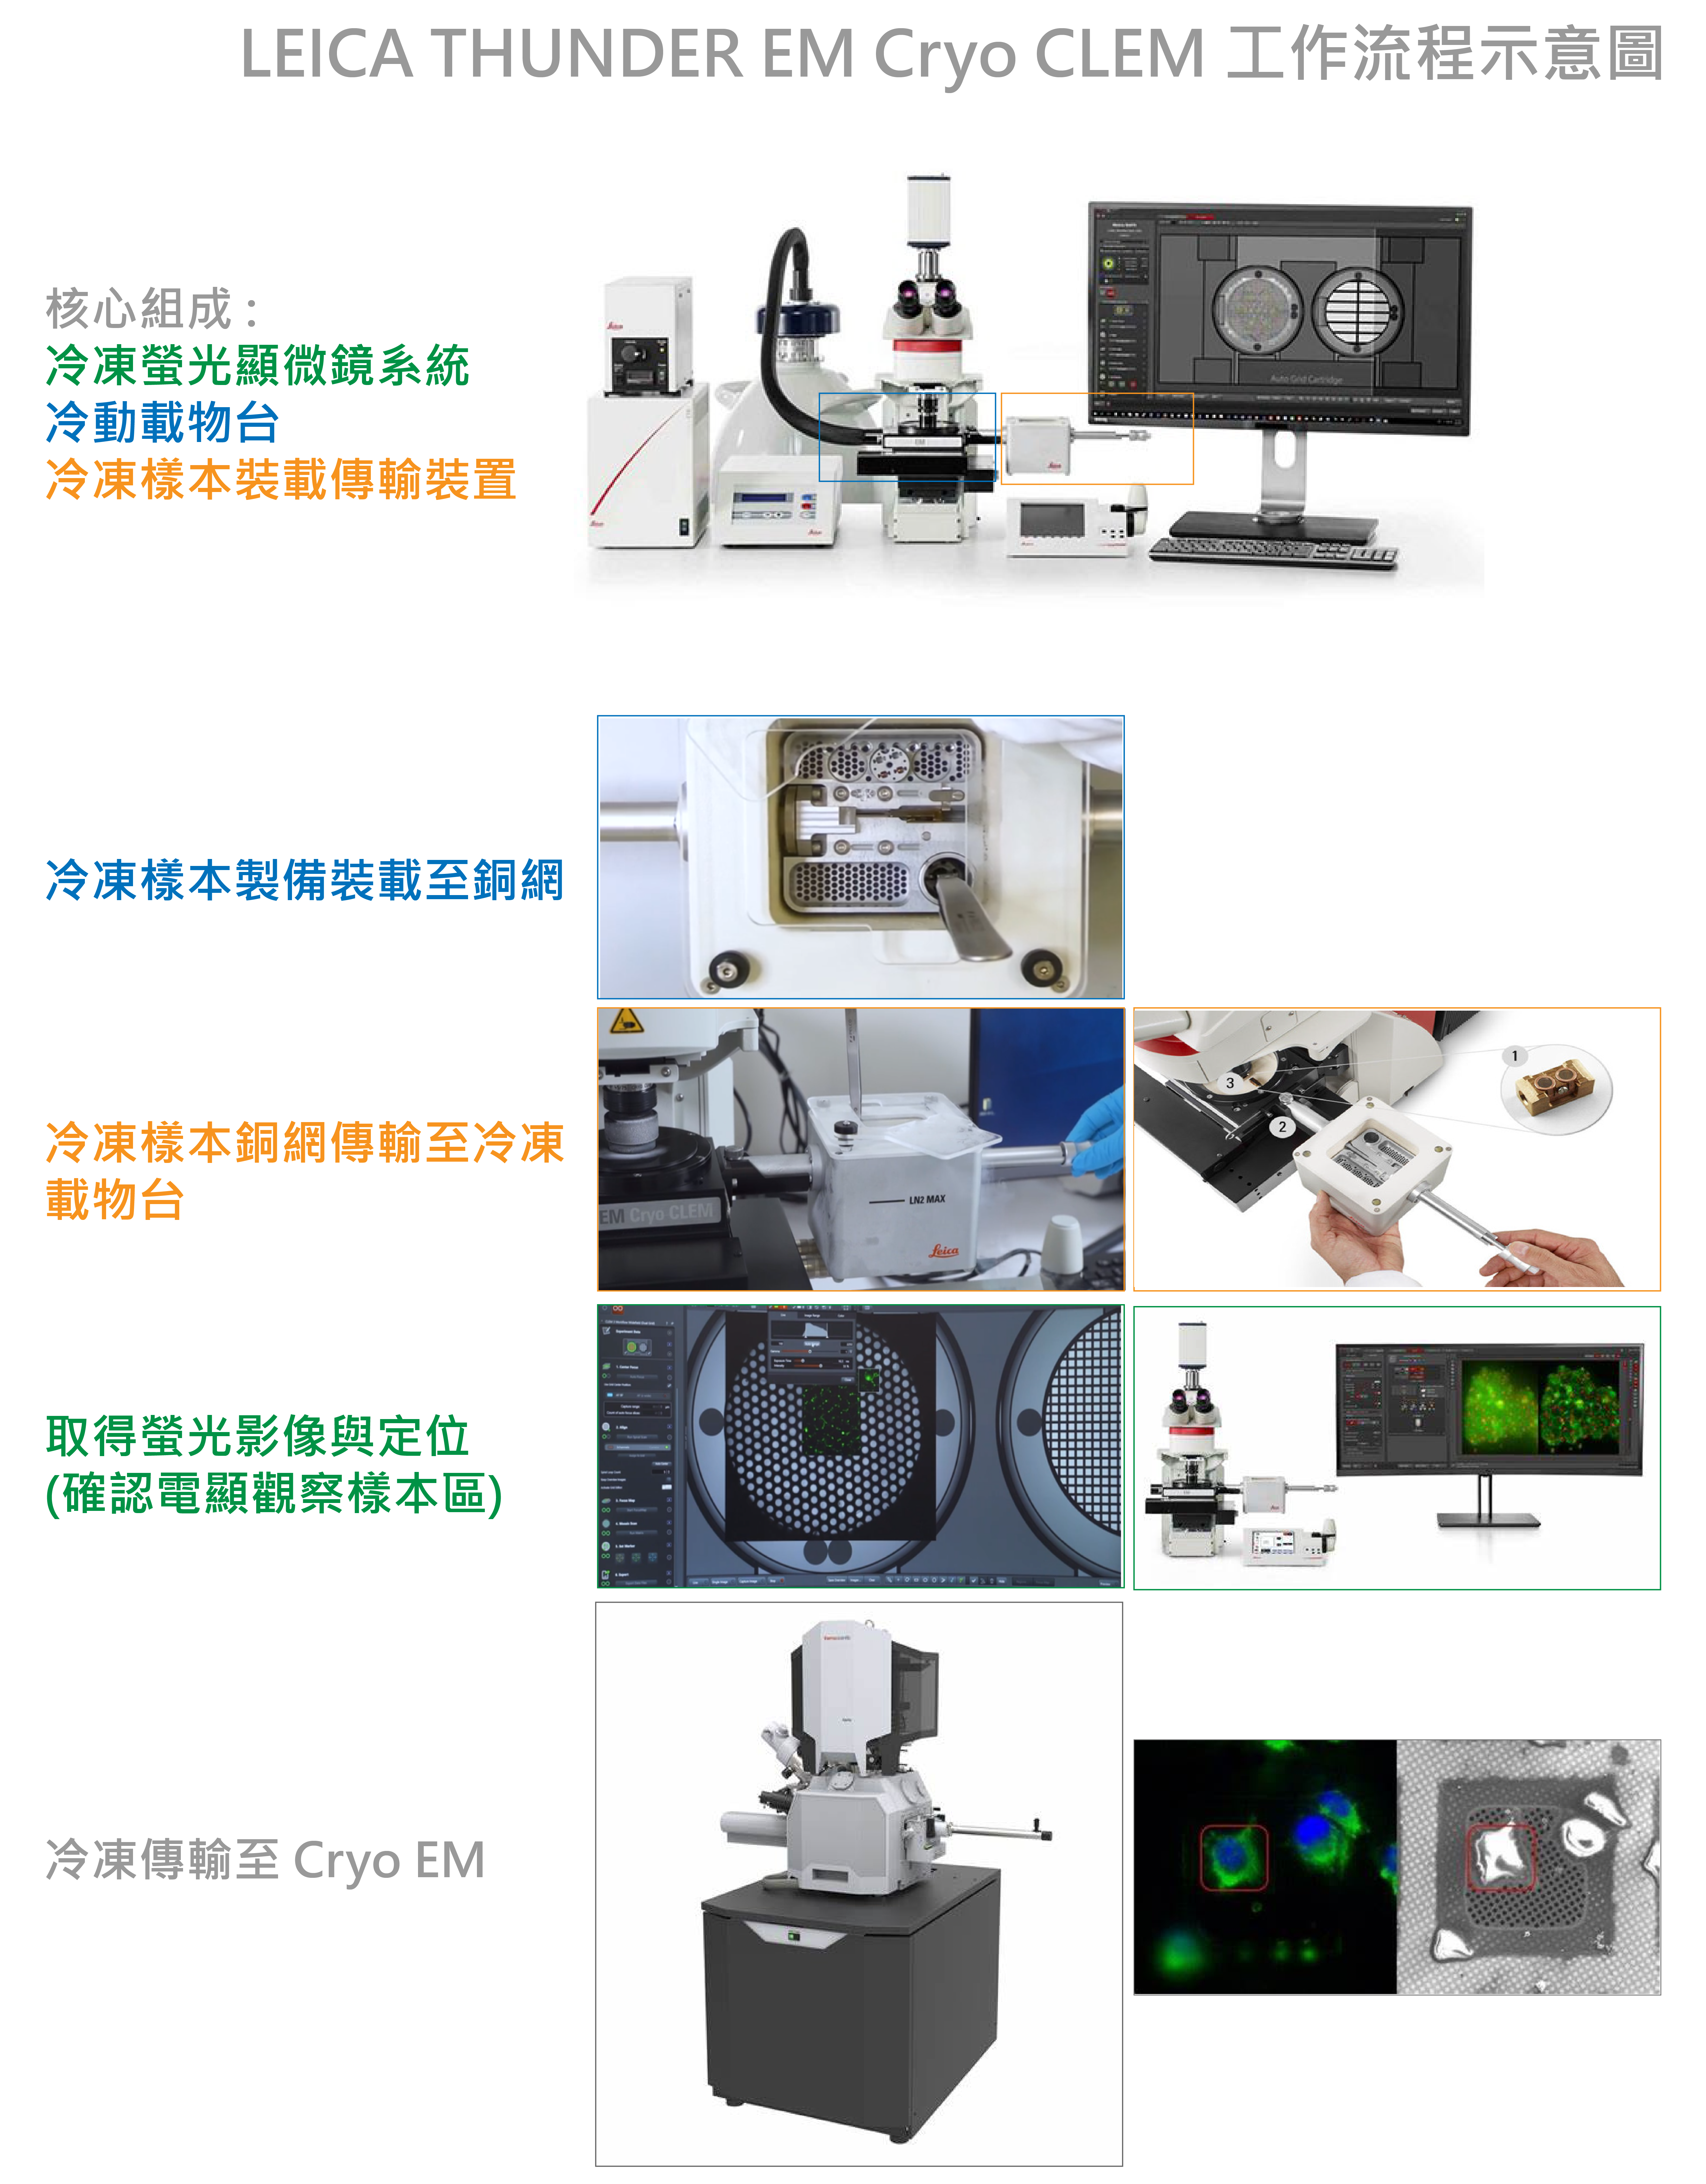
使用轉移艙將載網夾具載入到THUNDER Imager EM Cryo CLEM中。
1顯示夾具可以攜帶最多兩個載網;
2是用於將轉移艙對接到冷凍載物台;
3是冷凍載物台本身
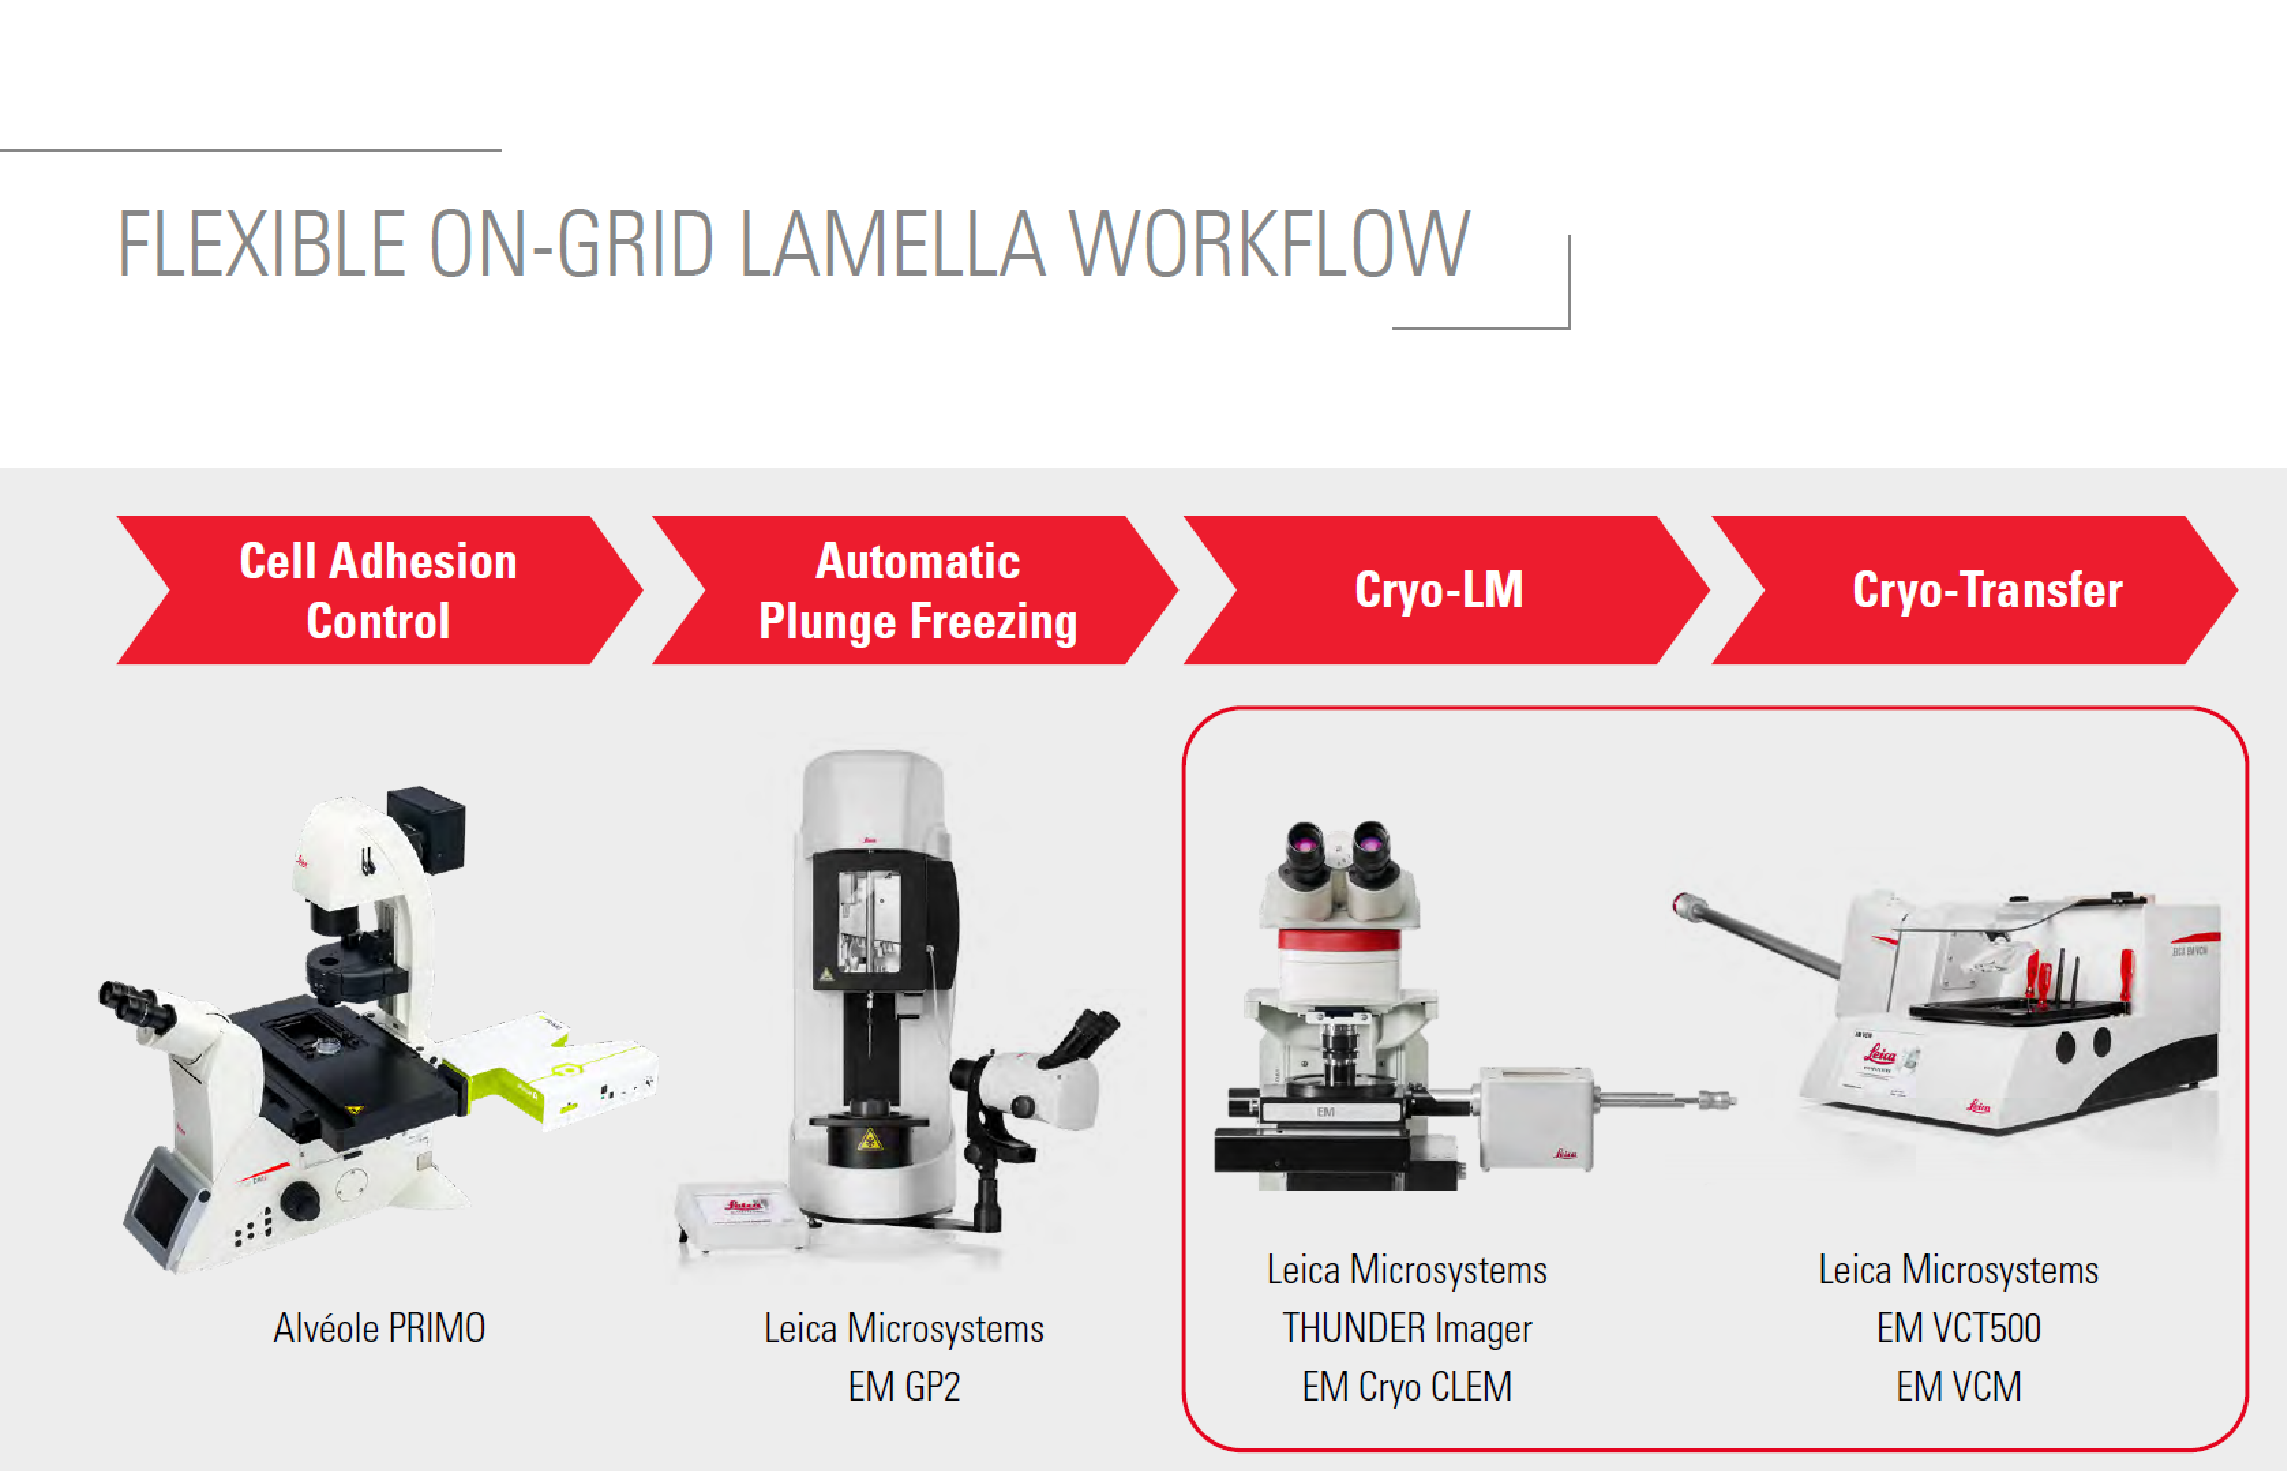
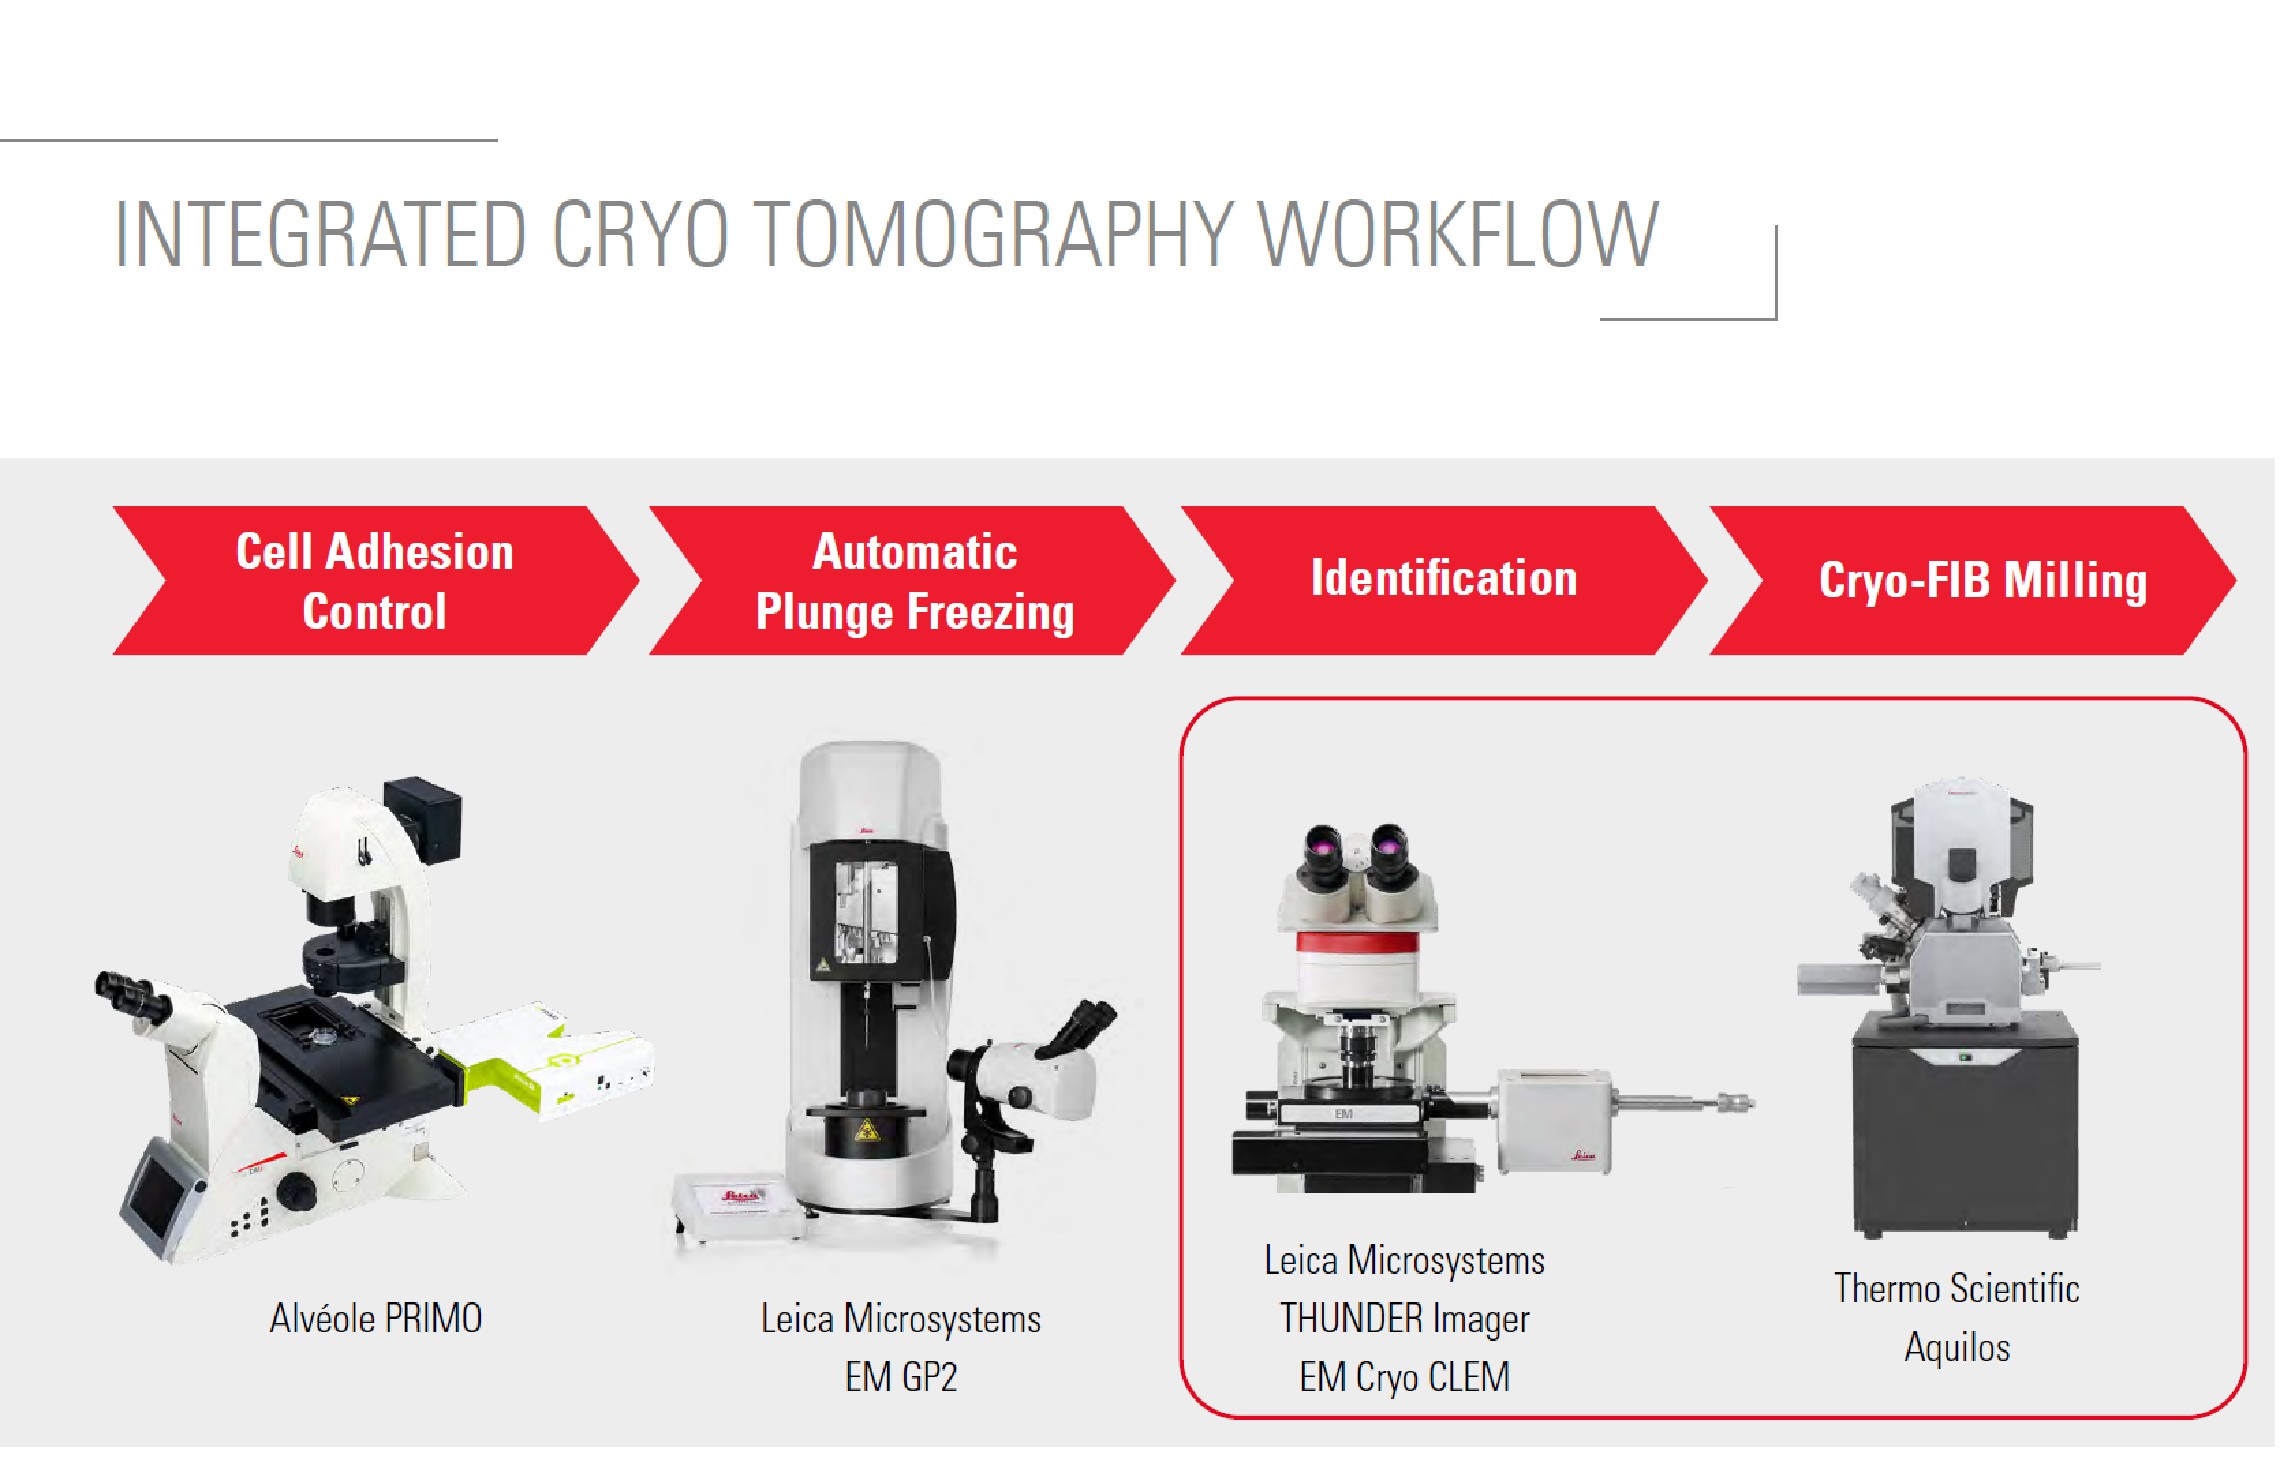
冷凍載網薄片工作流程
A) 使用Thermo Fisher Aquilos冷凍-FIB SEM.
(1)使用PRIMO進行細胞定位
(2)投入冷凍(EM GP2)
(3)識別感興趣區域(THUNDER Imager EM Cryo CLEM)
(4)使用Thermo Fisher Aquilos冷凍FIB SEM進行減薄和鍍膜
(5)在TEM中的成像。
B)適用於除了Thermo Fisher Aquilos冷凍-FIB SEM以外的所有 FIB-SEM供應商。
(1)使用PRIMO進行細胞定位
(2)投入冷凍(EM GP2)
(3)識別感興趣區域(THUNDER Imager EM Cryo CLEM)
(4)轉移(EM VCM)
(5)鍍膜(EM ACE600/EM ACE900)
(6)轉移(EM VCT500)
(7)在FIB中減薄
(8)在TEM中成像
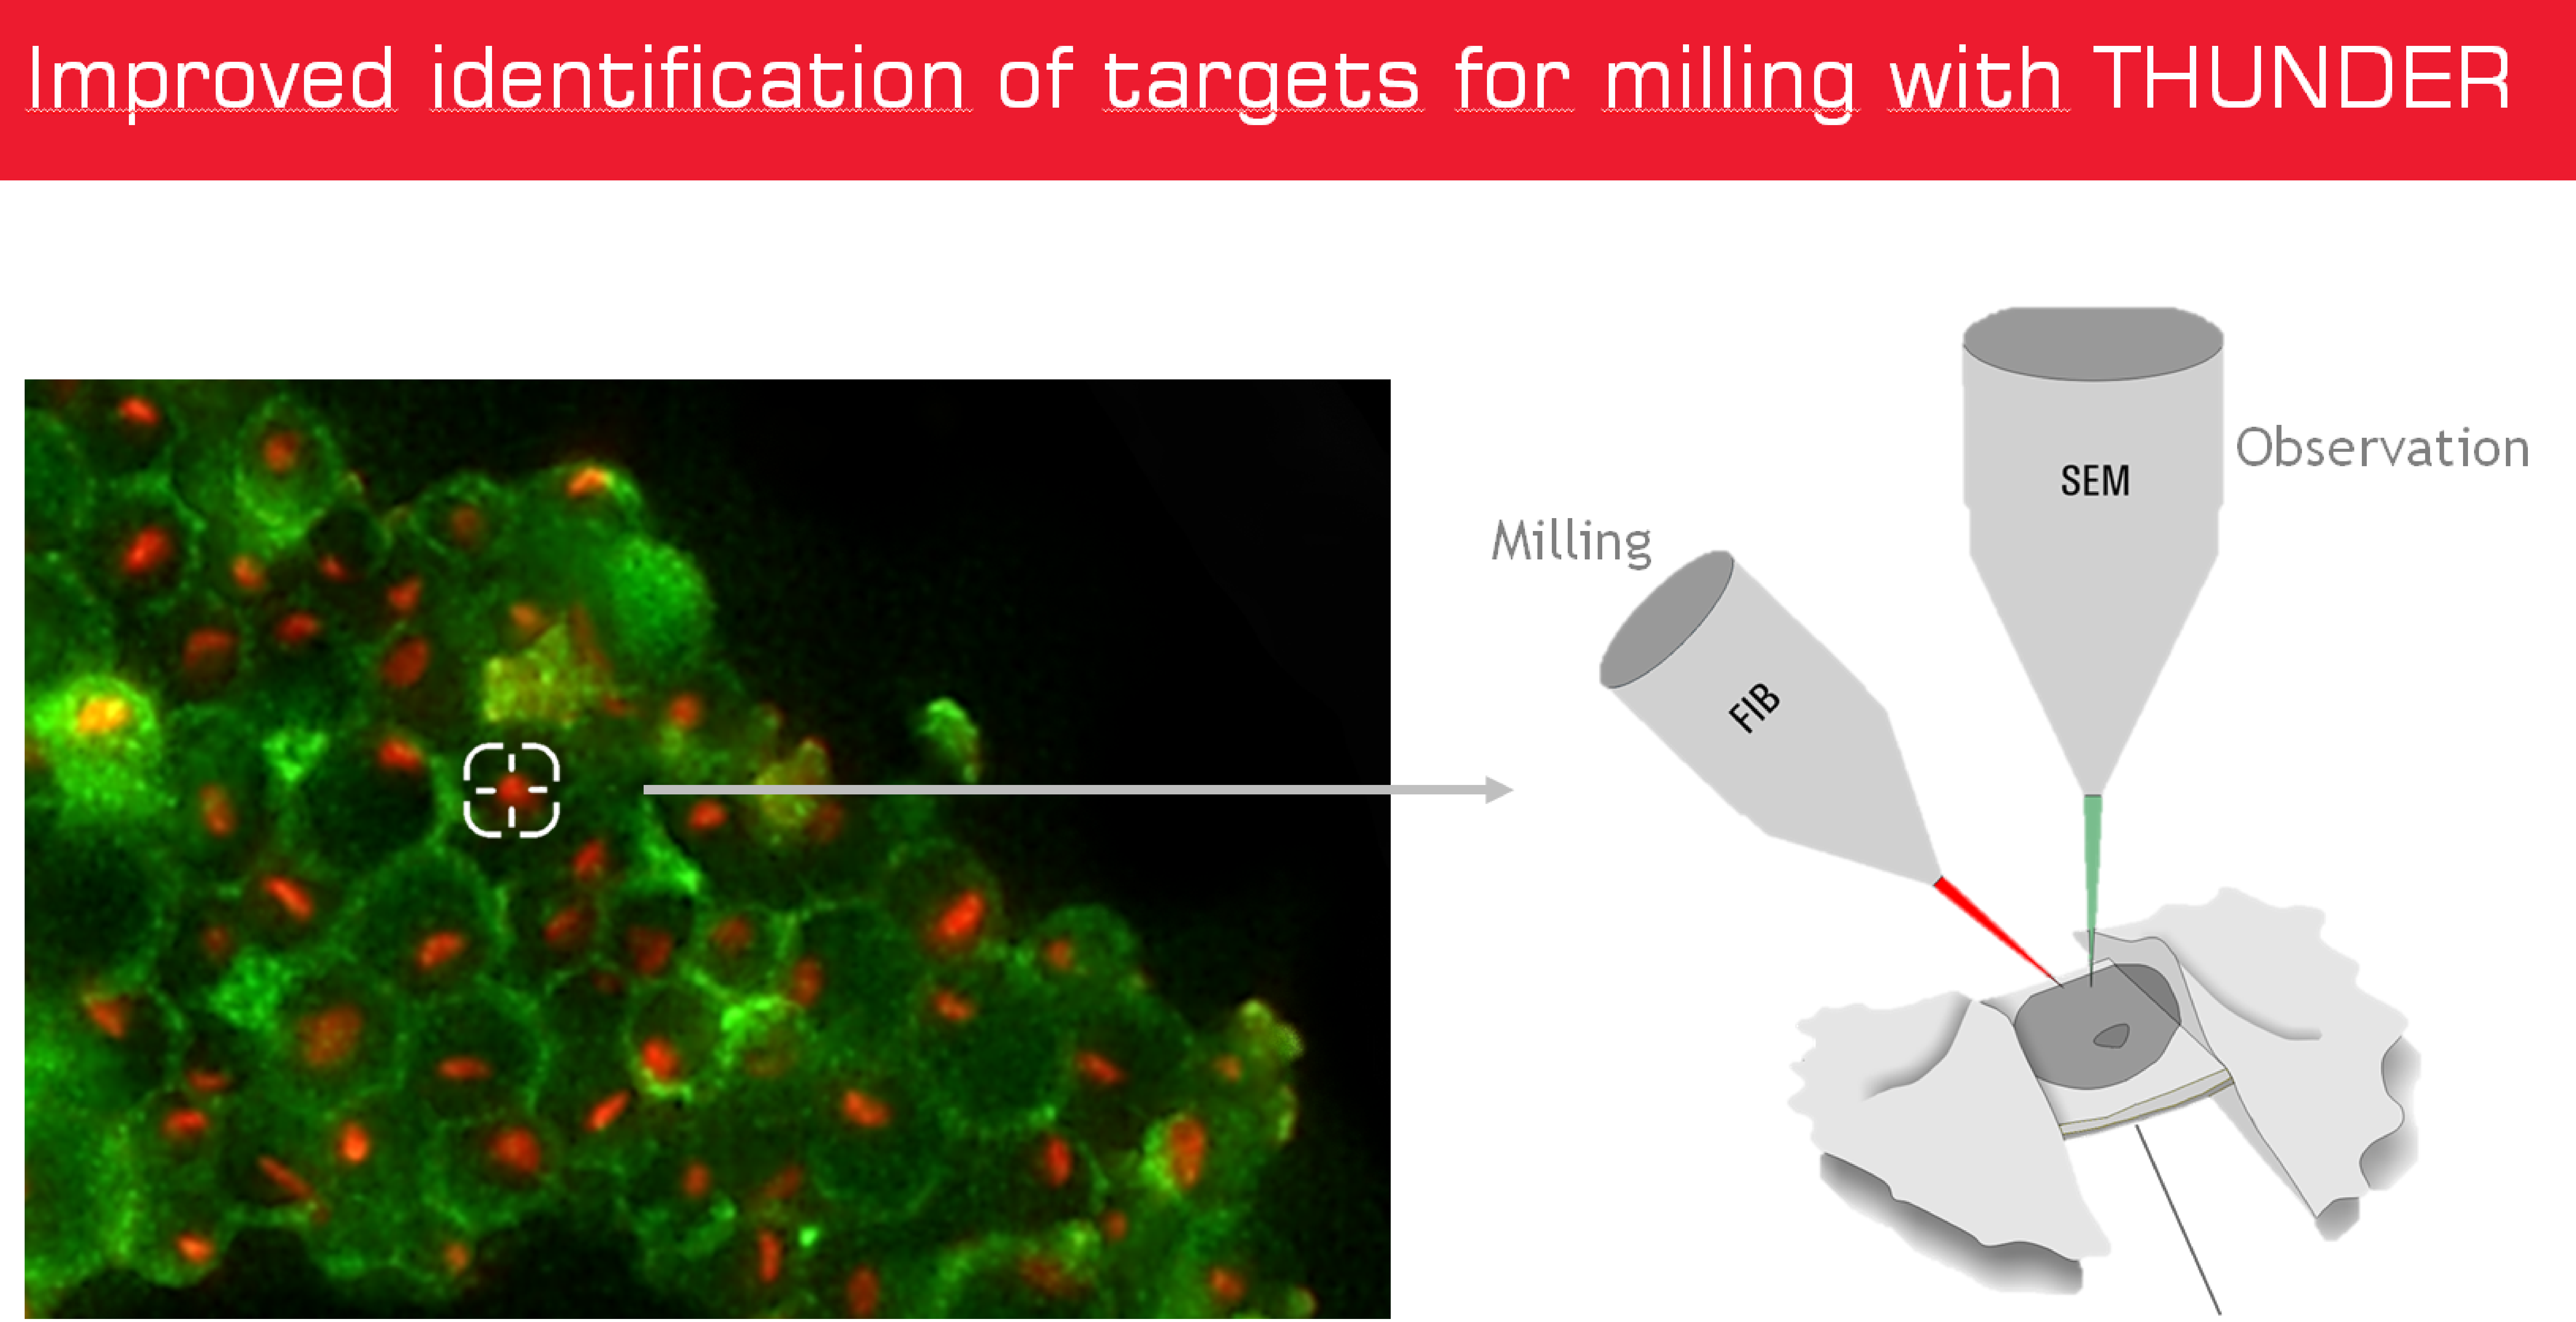
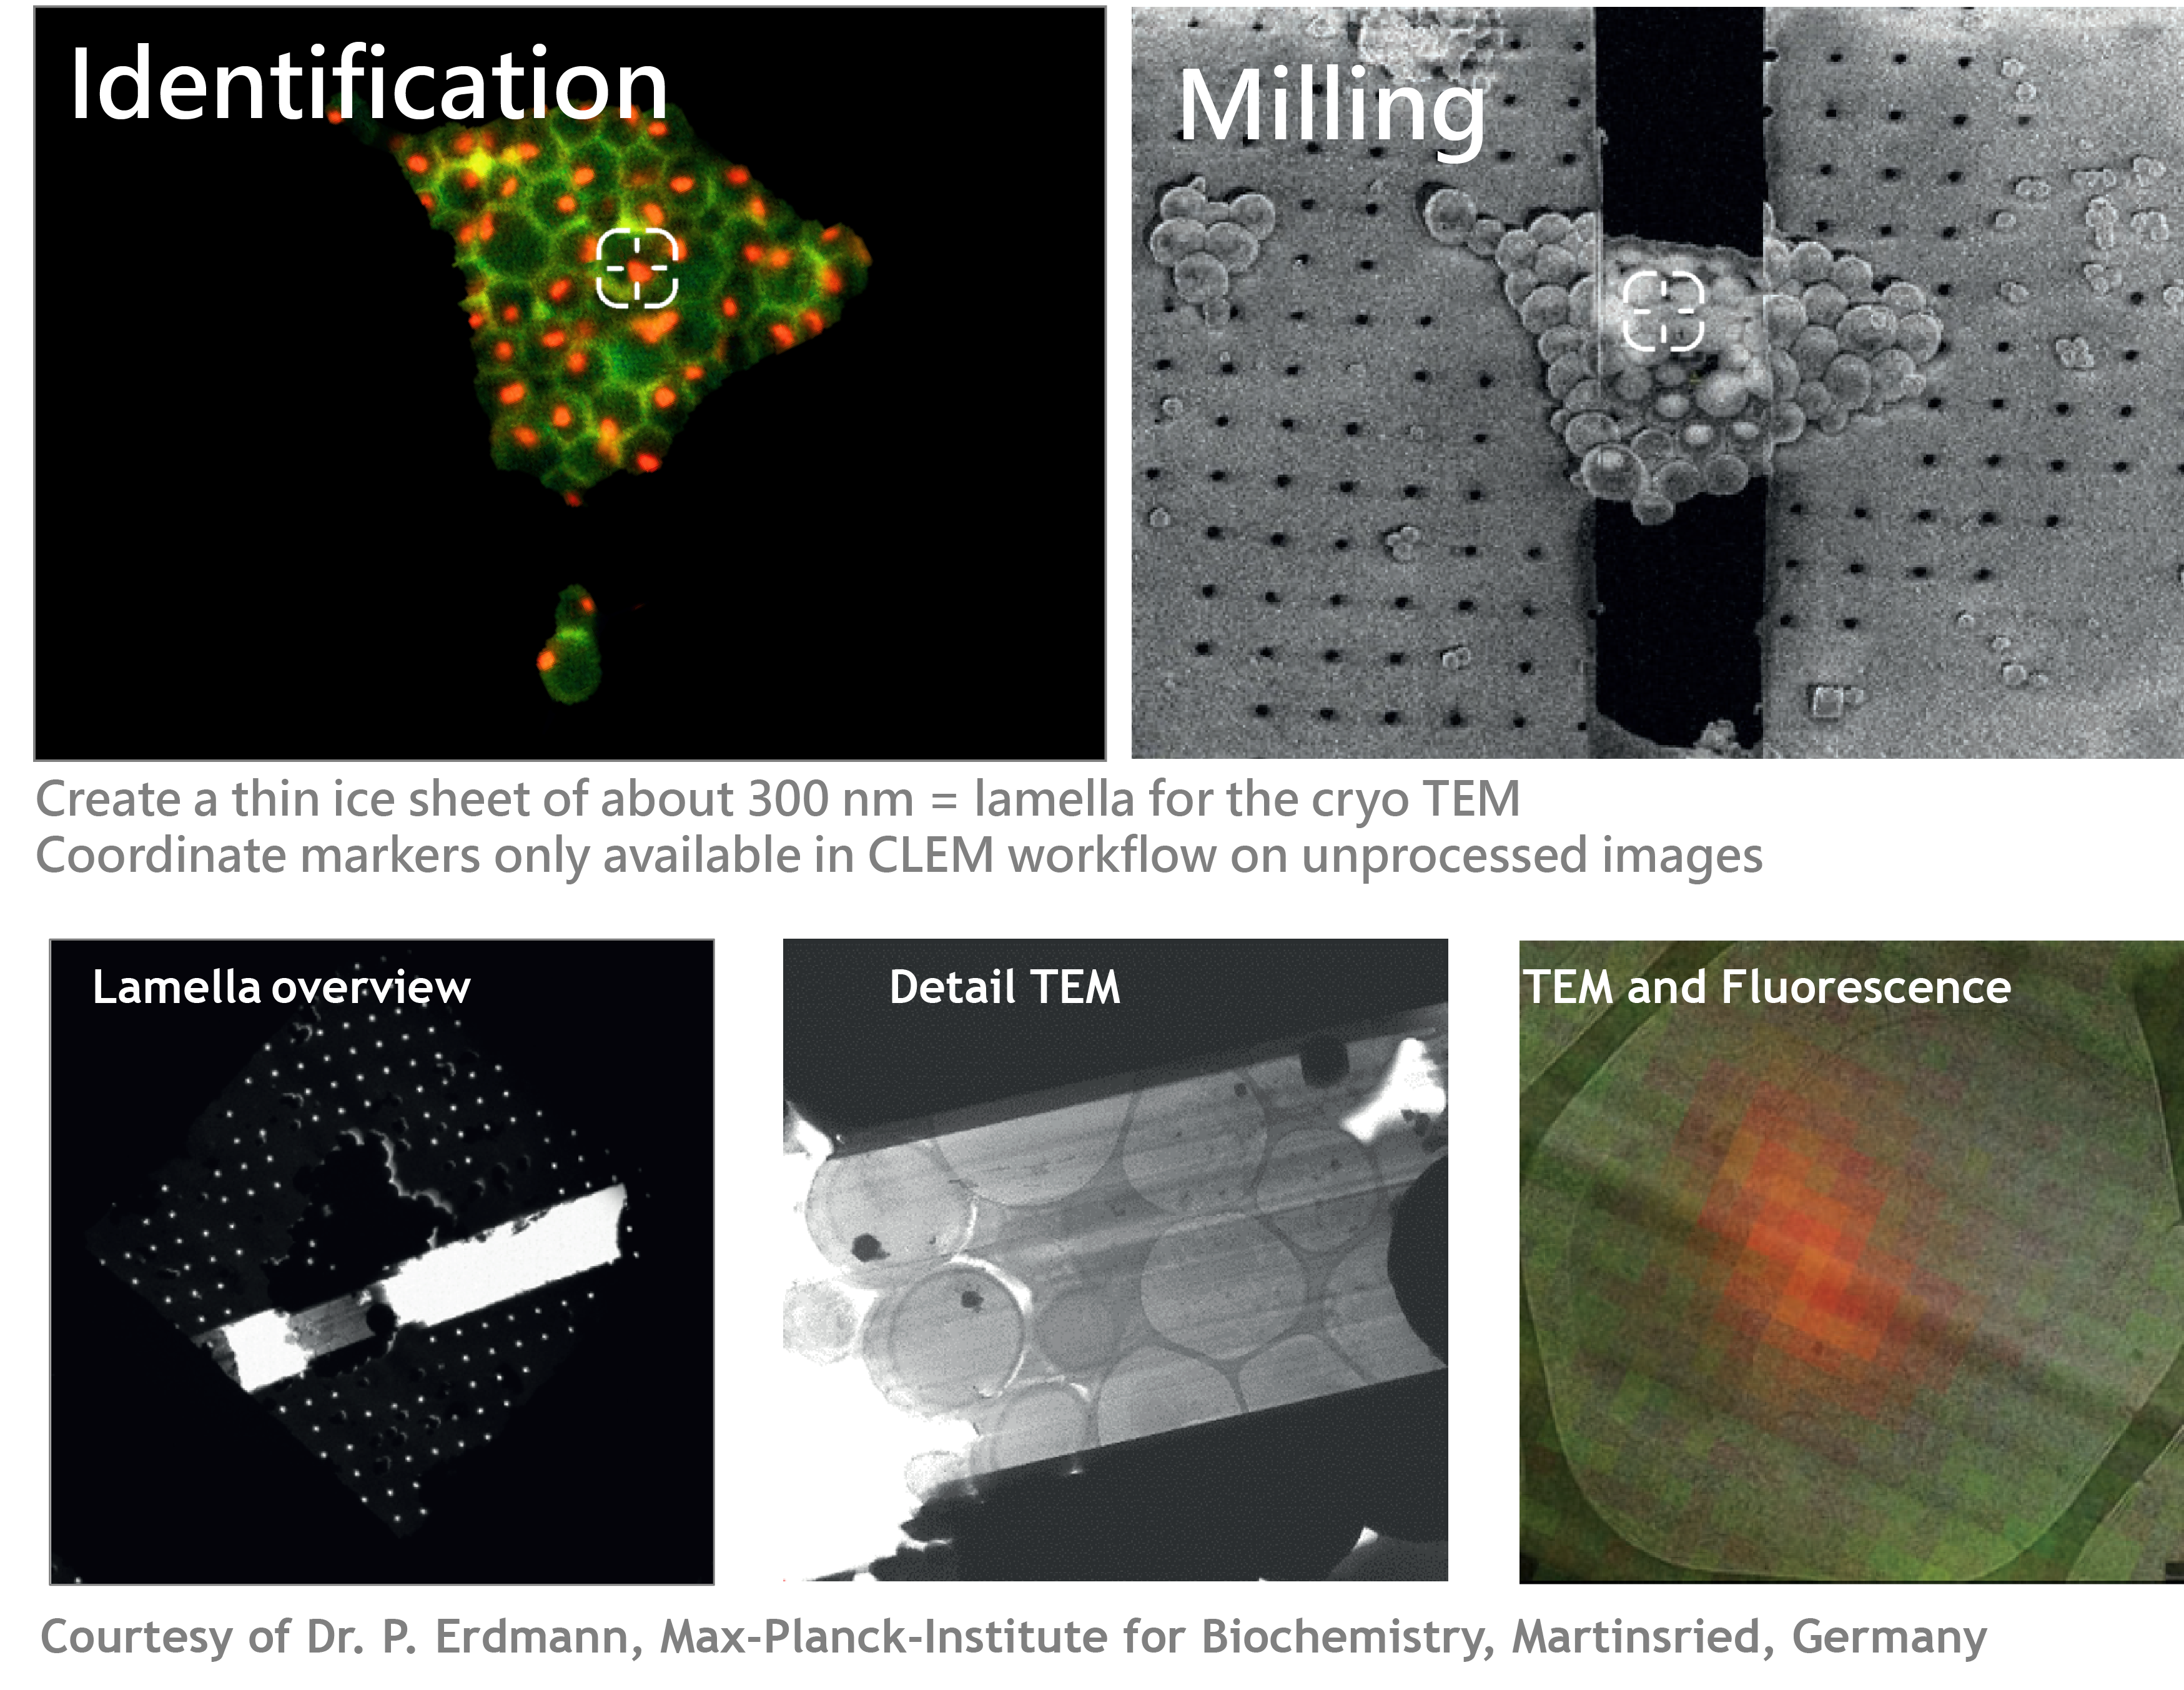
通過冷凍光學顯微鏡的座標變換輕鬆檢索
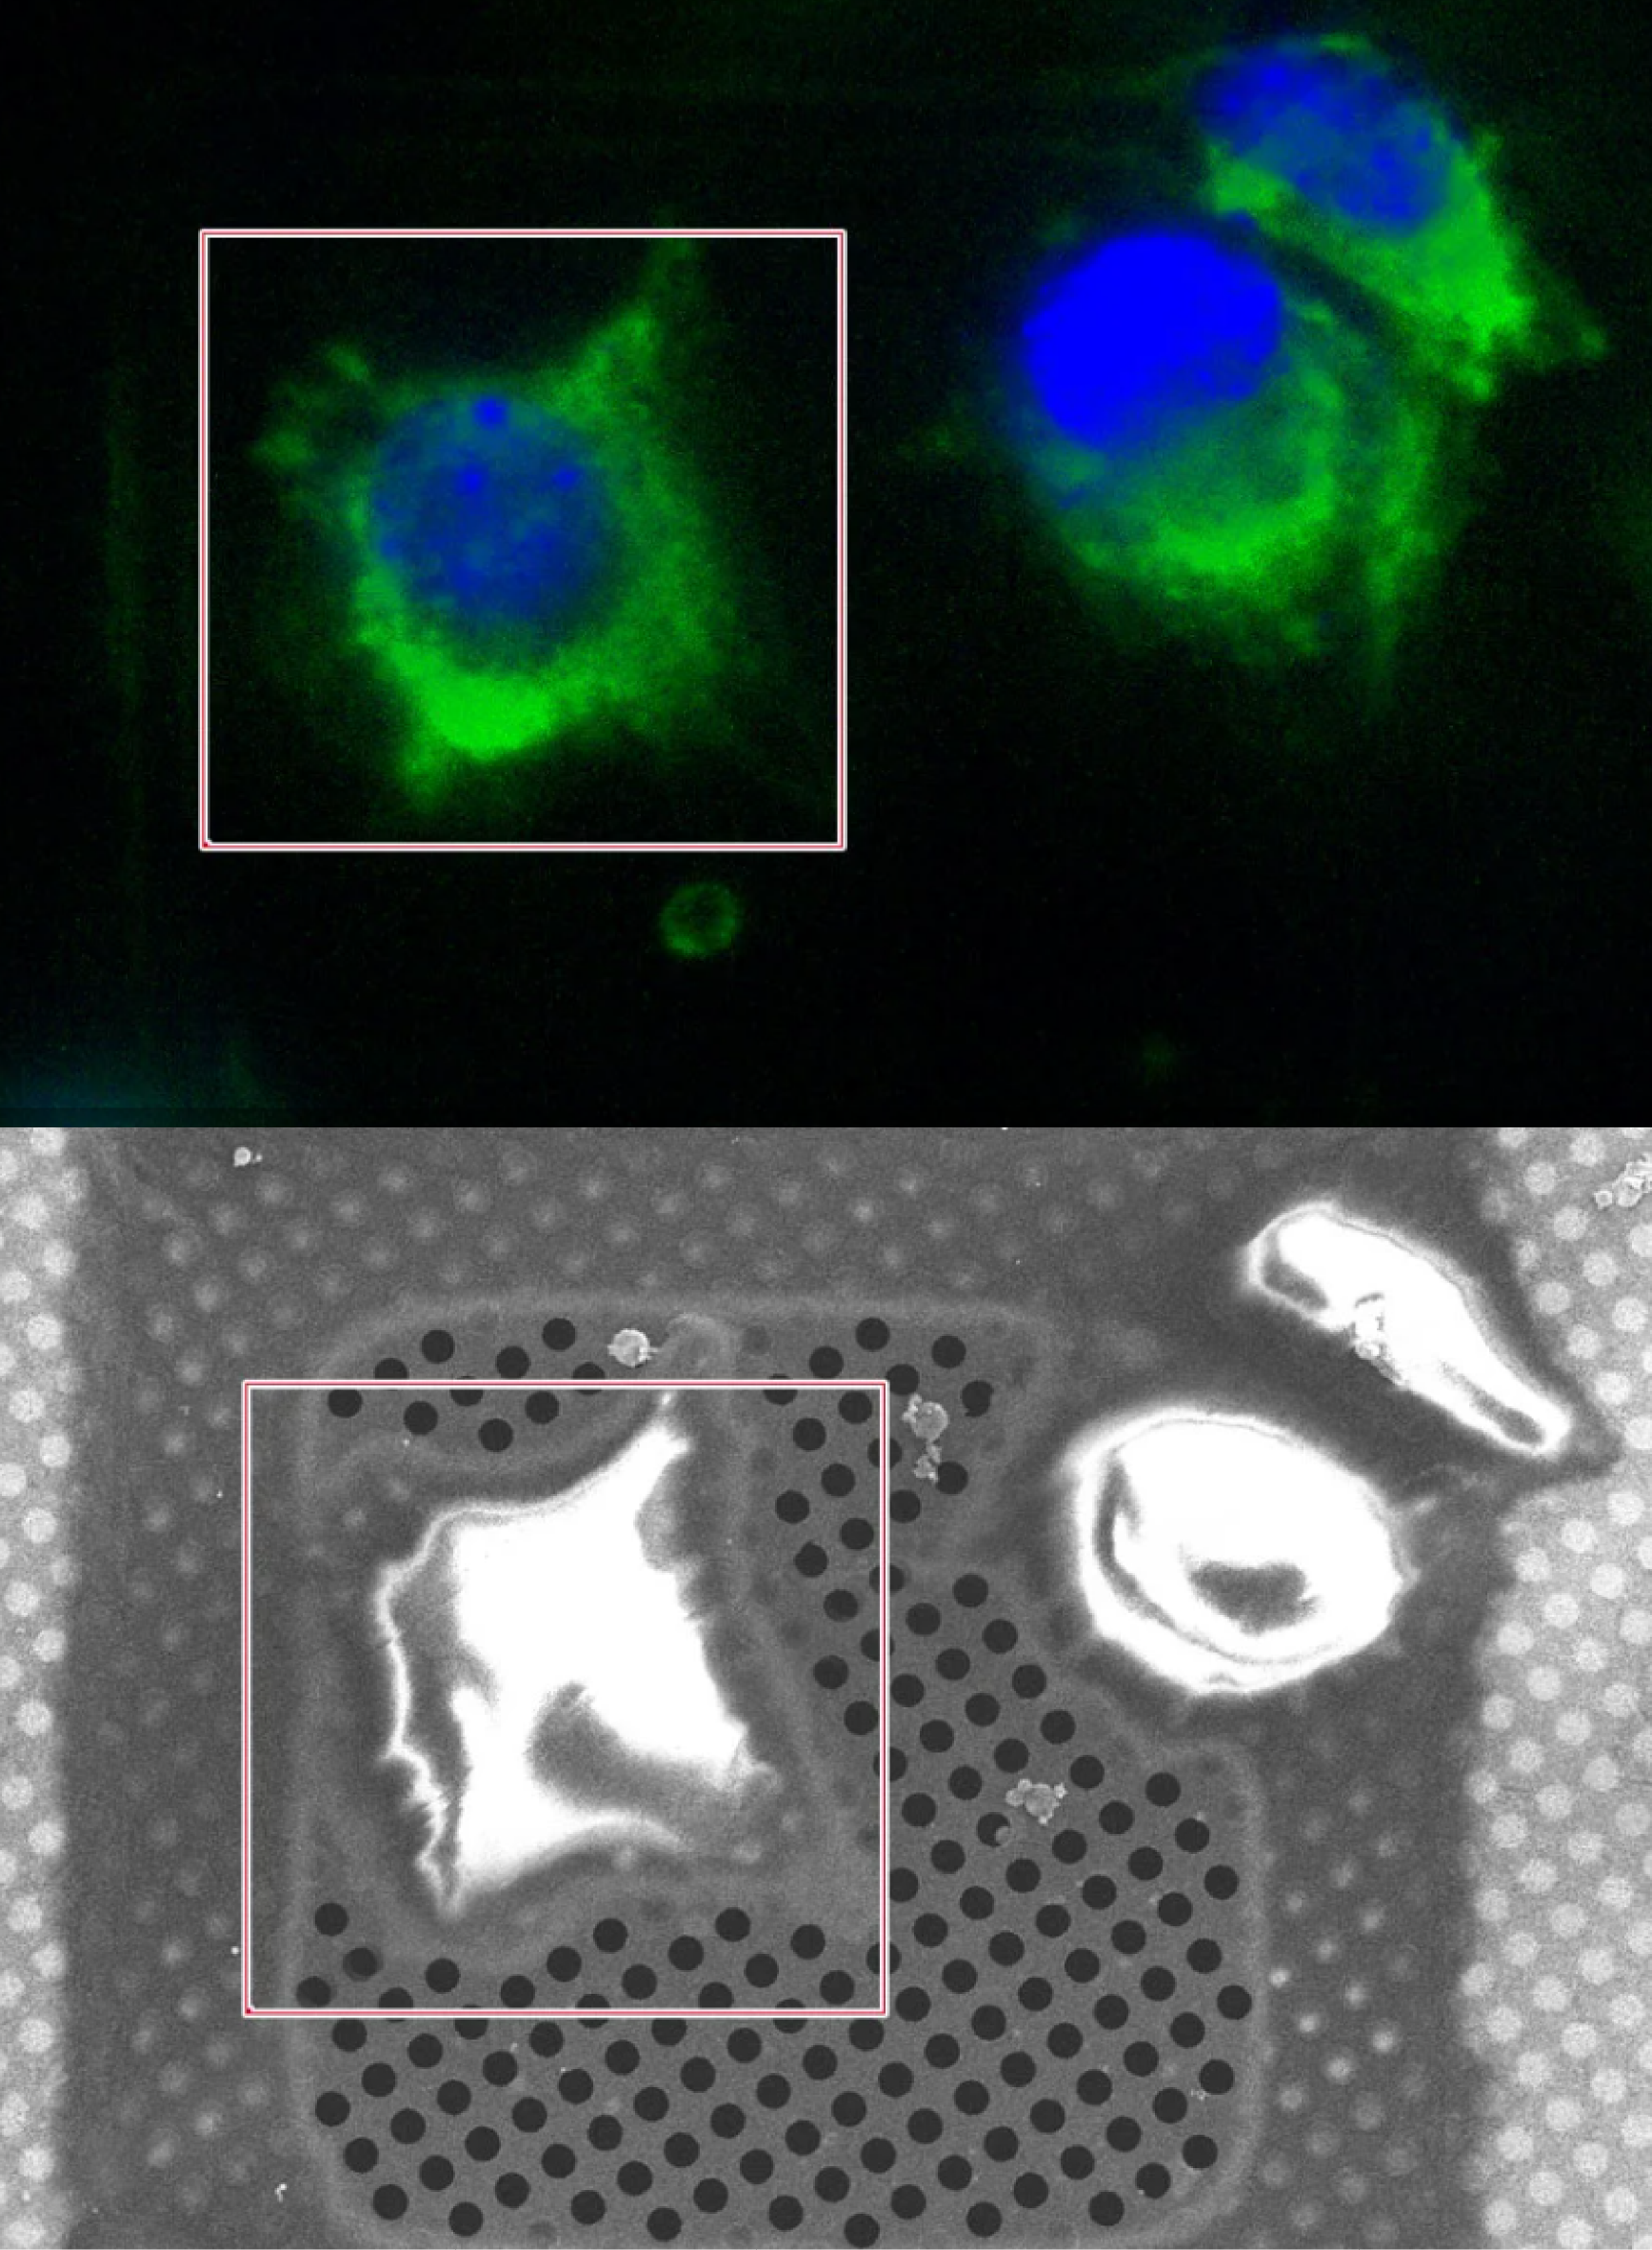
THUNDER EM Cryo CLEM 成像系統集成的軟體不僅能夠引導您完成整個成像工作流程,而且您只需點擊一下即可匯出原始圖像資料和相關座標。 您可以立即在您指定的電子顯微鏡中重新定位細胞靶區,並開始研究樣本的超微結構。
如果您選擇使用MAPS EM,還可以受益于我們共同開發的冷凍電子斷層掃描工作流程。 從使用LEICA EM GP2 進行玻璃化冷凍,到使用Krios™ G3i 冷凍透射電鏡進行 3D 圖像重建,該工作流程集成了完整的技術。
上圖 : 選擇和檢索座標。 在電子顯微鏡載網上呈現並被選擇性標記的細胞螢光圖像。
下圖 : 利用座標標記,在 Thermo Scientific Aquilos 上呈現並精准再定位了同一個細胞
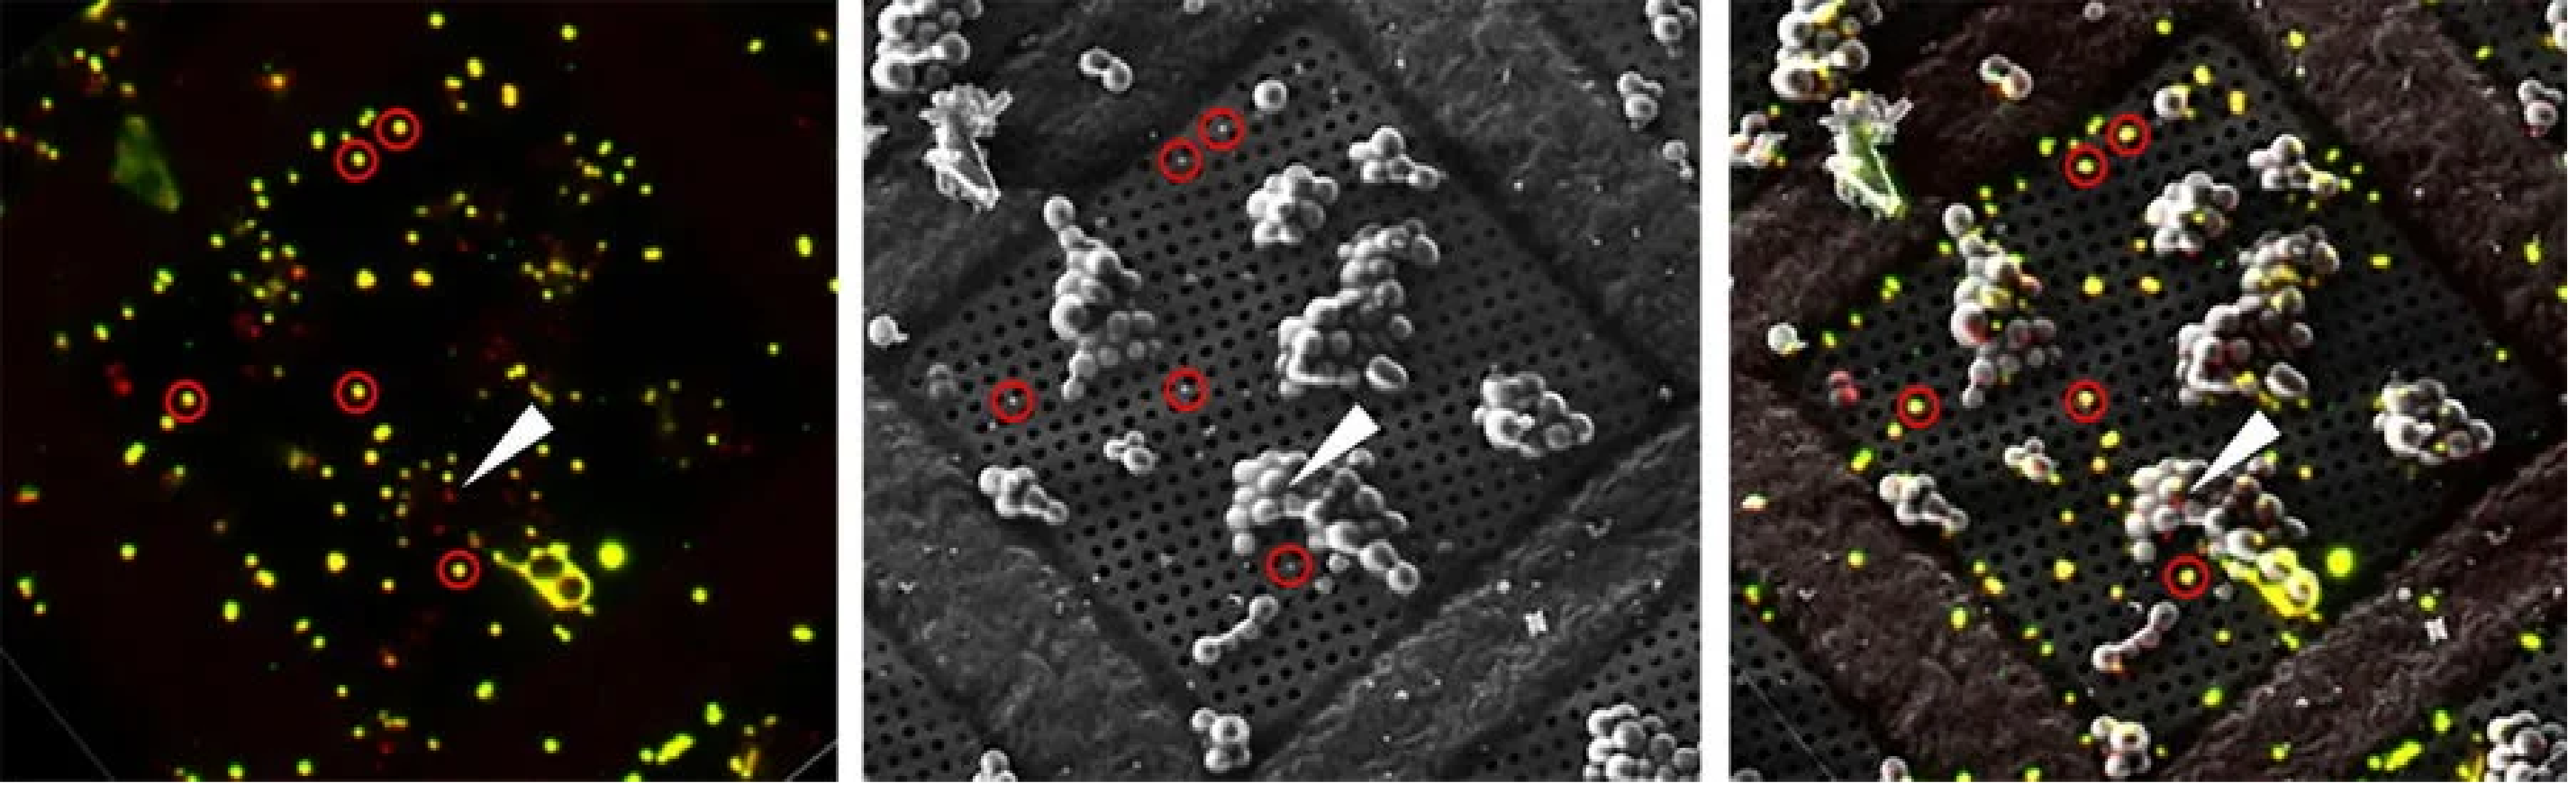
座標變換原理。使用基準點作為支撐點,將靶座標從光學顯微鏡轉移到FIB-SEM。
黃色:校準珠子;
紅色:Nup159-Atg8-split Venus.
左圖:共聚焦圖像的投影,圓圈標記示例性珠子、箭頭標記的目標NUP。
中間圖像:用相同珠子標記的SEM圖像。
右圖:通過在兩種模式中疊加珠子資訊創建疊加螢光和SEM圖像。
因此,目標位置被投射到SEM圖像中。
比例尺:20 µm
References
- Strnad M, Elsterová J, Schrenková J, Vancová M, Rego RO, Grubhoffer L, Nebesářová, Correlative cryo-fluorescence and cryo-scanning electron microscopy as a straightforward tool to study host-pathogen interactions, J.Sci Rep. 2015 Dec 10;5:18029. doi: 10.1038/srep18029.
- Schorb M, Gaechter L, Avinoam O, Sieckmann F, Clarke M, Bebeacua C, Bykov YS, Sonnen AF, Lihl R, Briggs JAG, New hardware and workflows for semi-automated correlative cryo-fluorescence and cryo-electron microscopy/tomography, J Struct Biol. 2017 Feb;197(2):83-93. doi: 10.1016/j.jsb.2016.06.020. Epub 2016 Jun 28.
- Kolovou A, Schorb M, Tarafder A, Sachse C, Schwab Y, Santarella-Mellwig R, A new method for cryo-sectioning cell monolayers using a correlative workflow, Methods Cell Biol. 2017;140:85-103. doi: 10.1016/bs.mcb.2017.03.011. Epub 2017 Apr 13.
- Schorb M, Sieckmann F, Matrix MAPS-an intuitive software to acquire, analyze, and annotate light microscopy data for CLEM, Methods Cell Biol. 2017;140:321-333. doi: 10.1016/bs.mcb.2017.03.012. Epub 2017 Apr 19.
- Yang JE, Larson MR, Sibert BS, Shrum S, Wright ER, CorRelator: Interactive software for real-time high precision cryo-correlative light and electron microscopy, J Struct Biol. 2021 Feb 18;213(2):107709. doi: 10.1016/j.jsb.2021.107709. Online ahead of print.
- Wolff G, Hagen C, Grünewald K, Kaufmann R, Towards correlative super-resolution fluorescence and electron cryo-microscopy, Biol Cell. 2016 Sep;108(9):245-58. doi: 10.1111/boc.201600008. Epub 2016 Jun 22.
- Klumpe S, Fung HKH, Goetz SK, Zagoriy I, Hampoelz B, Zhang X, Erdmann PS, Baumbach J, Müller CW, Beck M, Plitzko JM, Mahamid J, A Modular Platform for Streamlining Automated Cryo-FIB Workflows, bioRxiv preprint doi: https://doi.org/10.1101/2021.05.19.444745
- Paul DM, Mantell J, Borucu U, Coombs J, Surridge KJ, Squire JM, Verkade P, Dodding MP, In situ cryo-electron tomography reveals filamentous actin within the microtubule lumen, J Cell Biol. 2020 Sep 7;219(9):e201911154. doi: 10.1083/jcb.201911154.
- Allegretti M, Zimmerli CE, Rantos V, Wilfling F, Ronchi P, Fung HKH, Lee CW, Hagen W, Turoňová B, Karius K, Börmel M, Zhang X, Müller CW, Schwab Y, Mahamid J, Pfander B, Kosinski J, Beck M, In-cell architecture of the nuclear pore and snapshots of its turnover, Nature. 2020 Oct;586(7831):796-800. doi: 10.1038/s41586-020-2670-5. Epub 2020 Sep 2.
- Li X, Park D, Chang Y, Radhakrishnan A, Wu H, Wang P, Liu J, A mammalian system for high-resolution imaging of intact cells by cryo-electron tomography, Prog Biophys Mol Biol. 2021 Mar;160:87-96. doi: 10.1016/j.pbiomolbio.2020.09.005. Epub 2020 Oct 13.
- Klein S, Wimmer BH, Winter SL, Kolovou A, Laketa V, Chlanda P, Post-correlation on-lamella cryo-CLEM reveals the membrane architecture of lamellar bodies, Commun Biol. 2021 Jan 29;4(1):137. doi: 10.1038/s42003-020-01567-z.
- Hampton CM, Strauss JD, Ke Z, Dillard RS, Hammonds JE, Alonas E, Desai TM, Marin M, Storms RE, Leon F, Melikyan GB, Santangelo PJ, Spearman PW, Wright ER, Correlated fluorescence microscopy and cryo-electron tomography of virus-infected or transfected mammalian cells, Nat Protoc. 2017 Jan;12(1):150-167. doi: 10.1038/nprot.2016.168. Epub 2016 Dec 15.
- Vancová M, Rudenko N, Vaněček J, Golovchenko M, Strnad M, Rego ROM, Tichá L, Grubhoffer L, Nebesářová J, Pleomorphism and Viability of the Lyme Disease Pathogen Borrelia burgdorferi Exposed to Physiological Stress Conditions: A Correlative Cryo-Fluorescence and Cryo-Scanning Electron Microscopy Study, Front Microbiol. 2017 Apr 11;8:596. doi: 10.3389/fmicb.2017.00596. eCollection 2017.